Гістологія людини - О.Д. Луцик 2003
Спеціальна гістологія
Жіноча статева система
Жіноча Статева система, як і чоловіча, виконує такі функції: генеративну, що полягає в утворенні статевих клітин, та ендокринну, яка полягає у продукції статевих гормонів. Обидві ці функції пов'язані між собою і створюють умови для розмноження. Жіноча статева система, крім того, виконує ще дві функції: забезпечує внутрішньоутробний розвиток плода і секрецію молока. До органів жіночої статевої системи (рис. 4.104) належать Яєчники (жіночі статеві залози, або жіночі гонади), яйцеводи (маткові, або Фаллопієві, труби), Матка, піхва, Зовнішні статеві органи та Молочні залози.
Яєчник (ovarium) (рис. 4.104-4.107)- жіноча статева залоза, яка продукує Жіночі статеві клітини (яйцеклітини) та жіночі статеві гормони (естрогени та прогестерон). Яєчник - парний орган, розміщений біля бічної поверхні малого тазу. Має овальну форму, розміри 4x2x1,5 см, правий яєчник дещо більший, ніж лівий. Маса яєчника дорослої жінки становить 5-7 г, у новонародженої дівчинки - до 0,5 г, у старої жінки 2-3 г. Форма яєчника у новонародженої веретеноподібна, поверхня гладка; у дорослої жінки форма округла, а поверхня нерівна, горбкувата. Яєчник за допомогою дуплікатури очеревини прикріплений до широкої зв'язки матки.
Зовні яєчник укритий поверхневим епітелієм, що є похідним целомічного епітелію. Він є одношаровим кубічним з висотою клітин близько 18 мкм. Під епітелієм міститься білкова оболонка товщиною 100 мкм, яка складається з колагенових та еластичних волокон і невеликої кількості гладких міоцитів. Білкова оболонка у новонародженої дівчинки погано розвинена, її формування здійснюється на третьому-четвертому році життя. У яєчнику розрізняють кіркову та мозкову речовину.
Мозкова речовина утворена сполучнотканинною стромою, що містить велику кількість еластичних волокон, багато великих судин, нервові волокна, нервові закінчення і у 93% жінок - так звану сітку яєчника.
Кіркова речовина оточує мозкову в вигляді підкови, її немає у ділянці воріт яєчника. Кіркова речовина складається зі строми та паренхіми. Строма утворена сполучною тканиною, що містить колагенові та незначну кількість еластичних волокон. Ця сполучна тканина багата на фібробласти, подібні до гладких міоцитів, які мають назву інтерстиційних клітин і здатні продукувати гормони. Паренхіма складається з примордіальних, первинних, вторинних (пухирчастих), а також зрілих фолікулів (третинних фолікулів, або Граафових пухирців), жовтих і білуватих тіл, атретичних фолікулів, атретичних тіл.
Примордіальний фолікул складається з первинного овоцита (овоцита першого (І) порядку) (діаметр 15-25 мкм), який знаходиться у стадії диплотени профази мейозу, оточеного одним шаром плоских фолікулярних клітин діаметром до 9 мкм. Примордіальні фолікули мають діаметр близько 50 мкм, кулясту форму; розташовані на периферії кіркової речовини. Утворення їх починається із третього місяця ембріогенезу людини.
Первинні фолікули мають більші розміри, ніж примордіальні, фолікулярний епітелій стає кубічним, розташовується одним або кількома шарами. Об'єм овоцита також збільшується. У цих фолікулах вперше стає помітною прозора зона (див. нижче).
Вторинні (преантральні) фолікули оточені багатошаровим фолікулярним епітелієм, в них починає утворюватися порожнина антрум, заповнена рідиною, яку продукують фолікулярні клітини, фолікулярна рідина містить жіночі статеві гормони - естрогени. Такі фолікули починають утворюватися під час статевого дозрівання.
Class="center">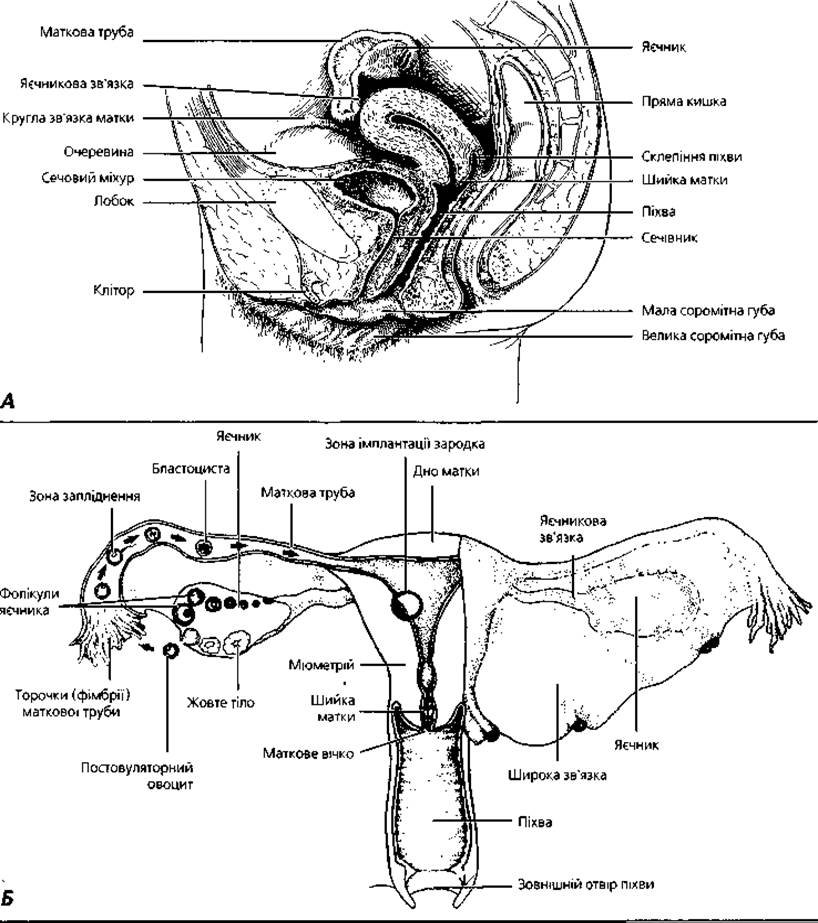
Рис. 4.104. Загальний план будови жіночої статевої системи: А - сагітальна проекція; Б - фронтальна проекція з відтворенням подій першого тижня ембріогенезу
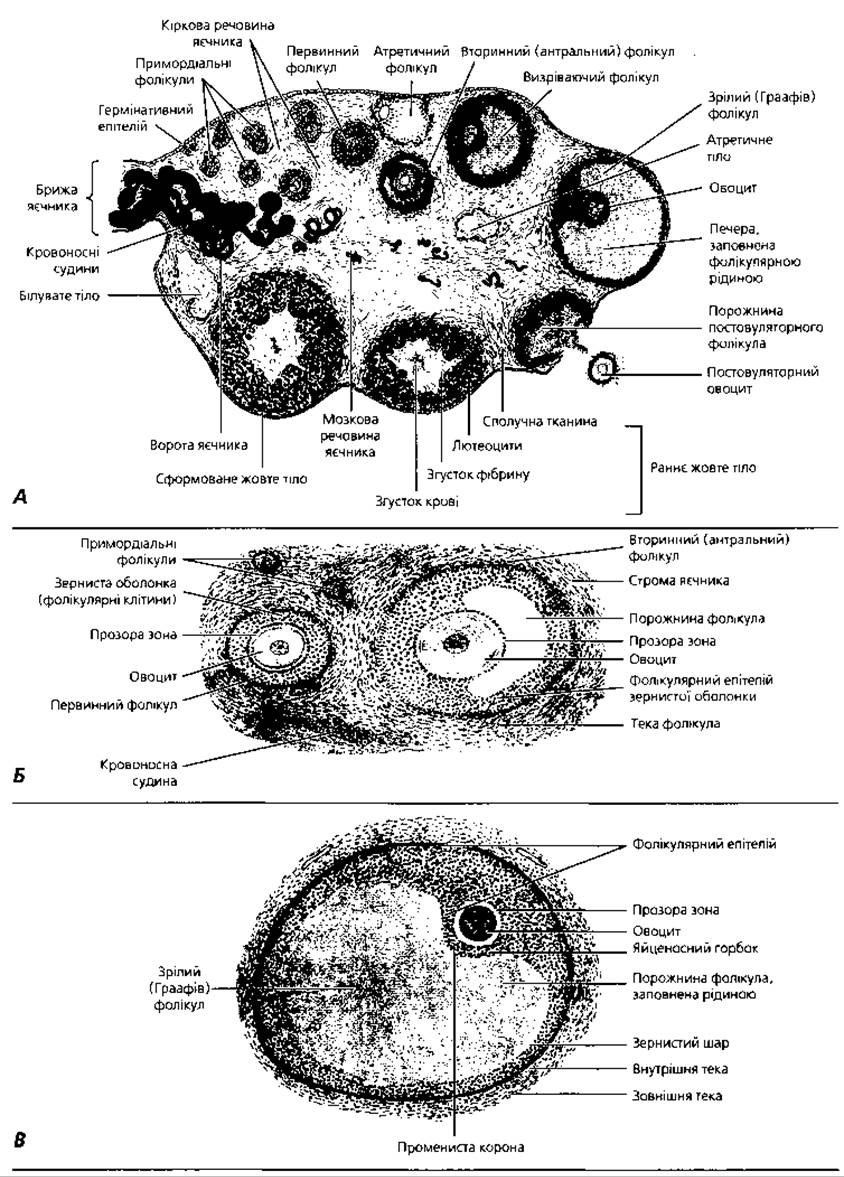
ис.4.105. Яєчник: А - схематичне відтворення; Б, В - деталі мікроструктури фолікулів різного ступеня зрілості
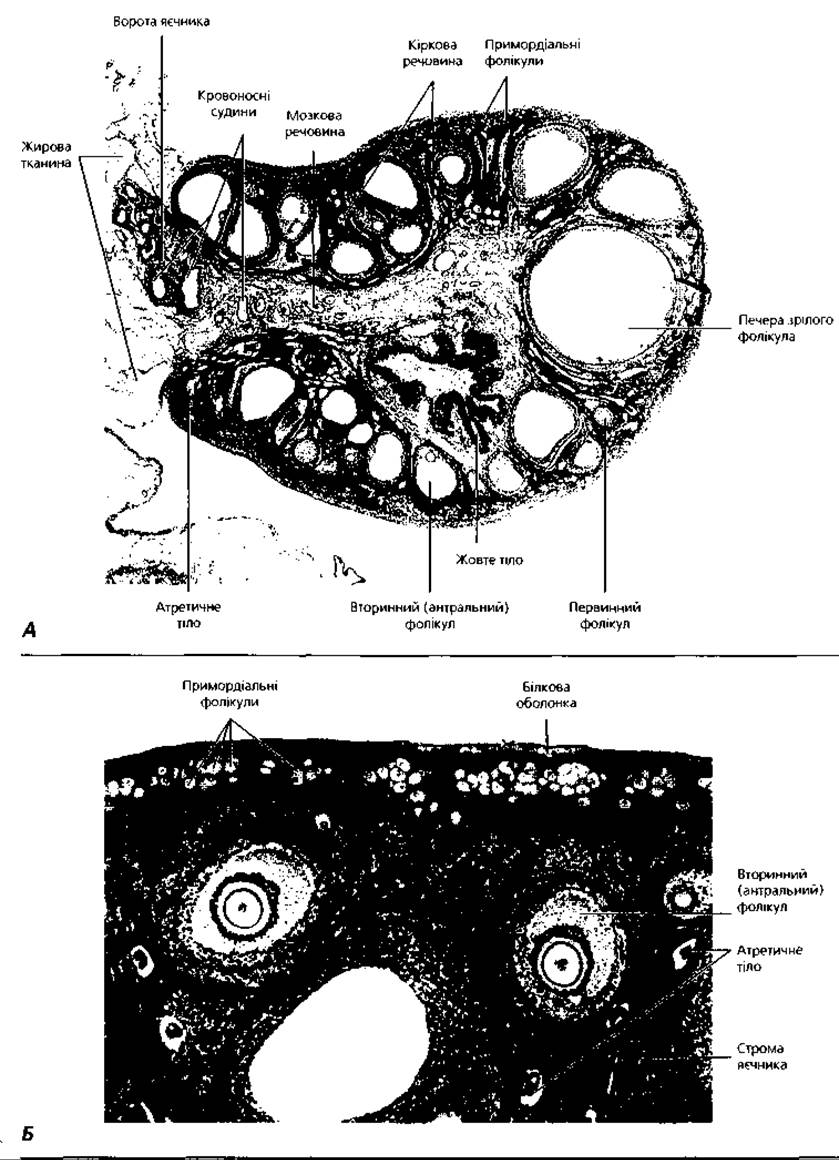
Рис. 4.106. Світлова мікроскопія яєчника: А - тотальний препарат, х 7; Б - кіркова речовина, х 90
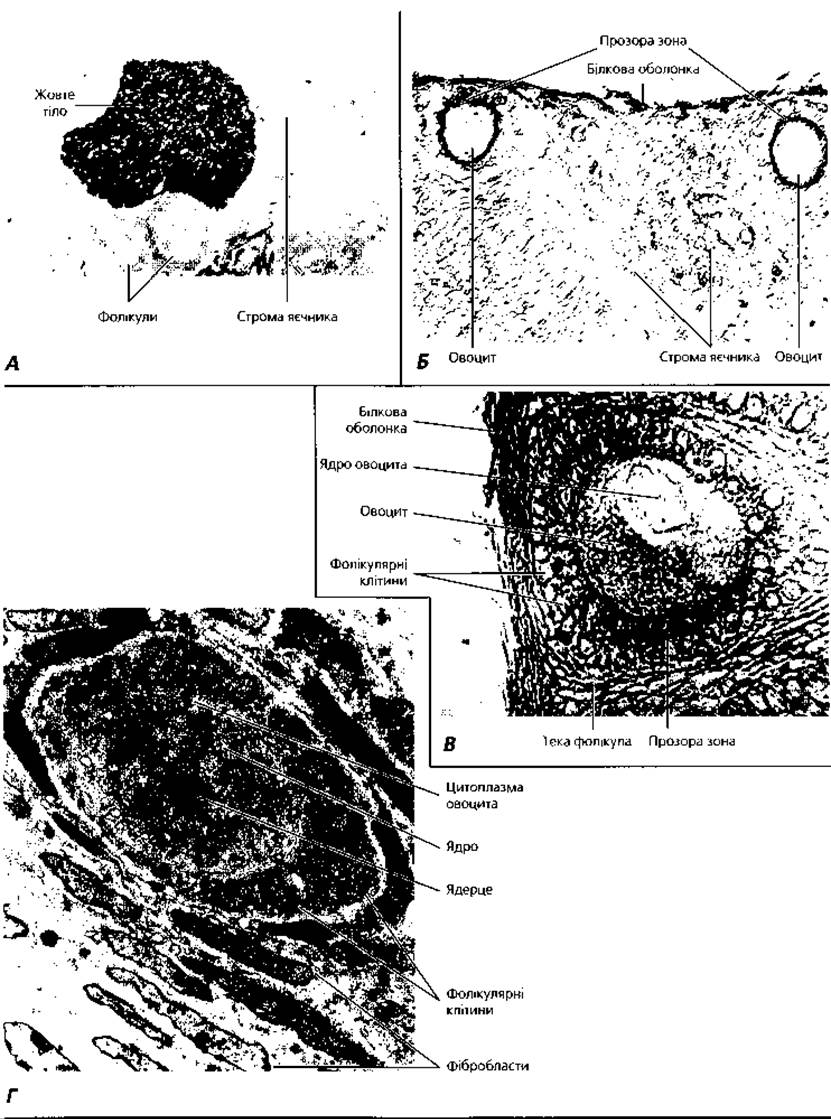
Рис.4.107. Деталі мікроморфології яєчника: А - жовте тіло, селективна гістохімічна реакція з лектином арахісу, х60, Б - демонстрація прозорої зони первинних фолікулів реакцією з лектином зародків пшениці, х100; В - первинний фолікул, ранні стадії біогенезу прозорої зони, виявлені реакцією з конканаваліном А, х500; Г - трансмісійна електронна мікроскопія первинного фолікула, х4000
Третинний, антральний, або зрілий (Граафів), фолікул - це фолікул із повністю сформованою великою порожниною, яка займає більшу частину його об'єму. Процес перетворення примордіальних фолікулів у первинні, вторинні й зрілі називають процесом росту фолікулів. Ріст відбувається під дією гонадотропних гормонів гіпофіза - фолітропіну та невеликої кількості лютропі- ну, але початкові стадії росту фолікулів не залежать від гонадотропінів. Ростуть одночасно кілька фолікулів, але в нормі у яєчнику приматів та людини багато великих фолікулів із порожниною гинуть ще до овуляції. З двадцяти великих фолікулів з порожниною лише два розвиваються у зрілі фолікули (Граафові пухирці) і один з них, досягнувши діаметра 1 см, звичайно дегенерує, а один здійснює овуляцію. Ріст фолікула супроводжується ростом овоцита. У всіх ссавців овоцит досягає максимального розміру (130-140 мкм) у фолікулах, стінка яких складається з багатьох шарів фолікулярних клітин, але порожнина фолікула ще не сформована. Є дані, що овоцити продукують специфічні речовини, які стимулюють проліферацію фолікулярних клітин і ріст фолікула. У людини число фолікулярних клітин у первинних фолікулах становить близько 50, а перед овуляцією - біля 50 мільйонів.
У процесі росту овоцит поступово вкривається захисними оболонками - прозорою зоною та променистою короною, фолікулярний епітелій формує зернистий шар (гранульозу) фолікула, всередині утворюється порожнина - антрум (фолікулярна печера). На внутрішній стінці фолікула зернистий шар утворює виступ - яйценосний горбок (кумулюс), у якому міститься овоцит, оточений багатьма шарами фолікулярних клітин. Зі сполучної Тканини навколо формується тека фолікула, яка складається з базальної мембрани, внутрішнього та зовнішнього шарів. Внутрішня тека містить судини, колагенові волокна, велику кількість нервових волокон і клітини текоцити. Зовнішня тека побудована із щільної сполучної тканини. Період росту завершується утворенням зрілого фолікула яєчника, який має вищеописану будову. Він пересувається до поверхні яєчника, стінка його стоншується і внаслідок підвищення тиску фолікулярної рідини лопається - відбувається овуляція.
Овуляція - це процес розриву стінки зрілого фолікула та поверхні яєчника з виходом овоцита. Перед овуляцією овоцит разом з клітинами променистого вінця відокремлюється від кумулюса і вільно плаває у порожнині фолікула. У ділянці яєчника, де фолікул випинає його поверхню, тека, білкова оболонка і покривний епітелій різко витоншуються і розпушуються під дією ферментів, продукованих клітинами фолікула і лейкоцитами, що сюди мігрують. Ця обмежена ділянка має назву стигма. За 30 хвилин до овуляції Кровообіг в ділянці стигми припиняється, що призводить до місцевого некрозу тканин. Стигма виступає над поверхнею яєчника у вигляді світлого випинання. Після її розриву овоцит, оточений клітинами кумулюса і хмаркою в'язкої фолікулярної рідини, потрапляє у просвіт яйцевода. Звичайно овоцит одразу ж потрапляє у маткову трубу, тому що торочки (фімбрії) її ампульної частини охоплюють яєчник під час овуляції. Овоцит у цей час перебуває у метафазі другого поділу дозрівання. Овуляція відбувається під дією лютропіну гіпофіза. Зернистий шар ростучих фолікулів продукує гормони естрогени (естрадіол, естрон і естріол). Текоцити продукують невелику кількість естрогенів і тестостерон (андроген). У фолікулярних клітинах тестостерон за допомогою ферменту ароматази (естрогенсинтетази) перетворюється в естрадіол (естроген). Синтез ароматази в яєчнику індукується фолітропіном. Естрогени зумовлюють прояви жіночих статевих ознак (розширення тазу, ріст молочних залоз, матки і маткових труб, оволосіння за жіночим типом, початок менструацій), а також зміни у статевих шляхах першої половини менструального циклу (фази регенерації та проліферації).
Після овуляції із залишків зрілого фолікула (гранульози і теки) утворюється тимчасова додаткова ендокринна залоза - жовте тіло (corpus luteum). У своєму розвитку жовте тіло проходить кілька стадій. Спочатку, під час розриву зрілого фолікула, відбувається крововилив з ушкоджених судин теки і Кров нагромаджується у центрі майбутнього жовтого тіла. Кров'яний згусток швидко організується, і на його місці виникає сполучнотканинний рубець. Клітини зернистого шару фолікула починають розмножуватися і проростають густою сіткою кровоносних капілярів. Ця стадія розвитку жовтого тіла має назву проліферації та васкуляризації. Далі клітини зернистого шару накопичують жовтий пігмент лютеїн і перетворюються у залозисті клітини жовтого тіла - зернисті лютеоцити. Іншим джерелом виникнення лютеоцитів є клітини внутрішньої теки - з них утворюються тека-лютеоцити. Ця друга стадія розвитку жовтого тіла називається стадією залозистого метаморфозу. Під час третьої стадії - розквіту - клітини жовтого тіла починають продукувати гормон прогестерон. Під впливом прогестерону відбувається фаза секреції менструального циклу, цей гормон готує матку до імплантації і є необхідним для нормального перебігу перших трьох-чотирьох місяців вагітності.
Стадія розквіту жовтого тіла, якщо не настає Вагітність, продовжується 12- 14 діб; таке жовте тіло досягає розмірів 1,5-2 см і називається циклічним, або менструальним, жовтим тілом. У тому випадку, коли жінка вагітніє, стадія розквіту жовтого тіла продовжується 11-12 тижнів, жовте тіло досягає 5 см у діаметрі й має назву жовтого тіла вагітності. Остання стадія під час утворення жовтого тіла має назву стадії зворотного розвитку. У цій стадії клітини жовтого тіла гинуть, а сполучна тканина центрального рубця розростається. Так виникає білувате тіло, яке зберігається в яєчнику протягом п'яти років, а потім розсмоктується, перетворюючись на сполучнотканинний рубець.
Атретичні фолікули й атретичні тіла виникають унаслідок того, що не всі фолікули, які почали ріст, досягають стадії зрілого фолікула. Частина з них редукується, проходить зворотний розвиток - атрезію. Під час атрезії спочатку гине овоцит, а його прозора зона - зморщена, потовщена, гіалінізова- на - довший час лишається у центрі атретичноготіла. Цим останнє відрізняється від жовтого тіла, в центрі якого міститься сполучнотканинний рубець. У разі утворення атретичного тіла після загибелі овоцита починають розростатися клітини внутрішньої теки, які продукують естрогени. Отже, процес атрезії фолікулів необхідний не лише для елімінації зайвих яйцеклітин, але й для забезпечення організму естрогенами. Процес атрезії фолікулів зумовлений білковим гормоном гонадокриніном (аналог інгібіну яєчок), який продукується водночас з естрогенами зернистим шаром ростучих та зрілих фолікулів. У яєчнику продукується ще один білковий гормон - релаксин, який під час пологів сприяє розм'якшенню лобкового зчленування, а також розкриттю каналу шийки матки. Крім того, великі фолікули продукують гормон інгібін, який гальмує продукцію фолітропіну і простагландини.
Хілусні клітини, які локалізовані в ділянці воріт яєчника в мозковій речовині і подібні до клітин Лейдіга в яєчку, продукують андрогени. їхня гіперплазія може зумовити маскулінізацію.
Характеристика овогенезу. Овогенез - процес розвитку жіночих статевих клітин - включаєтри періоди: розмноження, росту і дозрівання (рис. 4.108).
Період розмноження триває в яєчнику плода з другого по п'ятий місяць ембріогенезу і полягає у розмноженні міотичним шляхом клітин овогоній. Овогонії утворюються з первинних статевих клітин гоноцитів, які мають екстрагонадне походження, мігрують у зачаток гонади, взаємодіють з клітинами фолікулярного епітелію і перетворюються в овогонії. Овогонії, на відміну від гоноцитів, мають високу мітотичну активність. У результаті розмноження кількість овогонів в одному яєчнику досягає 1-5 мільйонів. Паралельно з розмноженням відбувається масова загибель овогоній шляхом апоптозу, тому їхня кількість до народження значно зменшується. Після останнього мітотичного поділу овогонії перетворюються у прелептотенні овоцити і вступають до наступної фази овогенезу - періоду росту.
Період росту в овогенезі людини починається з третього місяця ембріонального розвитку і полягає в утворенні первинних овоцитів (овоцитів І), у ядрі яких відбувається складна перебудова, що є підготовкою до зменшення кількості хромосом. У цей час збільшуються розміри самого овоцита, він оточується фолікулярними клітинами, утворюються фолікули. Цей процес має назву малого росту. Овоцити І порядку вступають у профазу мейозу і так само, як це відбувається у сперматоцитах І порядку (див. розділ "Чоловіча статева система"), проходять стадії лептотени, зиготени (другий-сьомий місяці ембріогенезу), пахітени і диплотени (шостий-дев'ятий місяці). Але, на відміну від чоловічого мейозу, в овогенезі за профазою не настає метафаза, а Мейоз блокується, і овоцити надовго переходять у диктіотену - своєрідну фазу, властиву лише овогенезу.
Зупинку овоцита І порядку в диплотені профази 1-го мейотичного поділу забезпечує так званий інгібітор дозрівання овоцитів - ОМІ (англ. oocyte maturation inhibitor). У диктіотені Хромосоми овоцита І порядку деспіралізуються і стають невидимими до закінчення періоду росту. У людини та інших ссавців овоцити переходять у диктіотену ще у внутрішньоутробний період або відразу після народження і перебувають у цьому стані десятки років (від 10-13 до 45-50 років). У людини різні генерації овоцитів проходять профазу на різних стадіях пренатального онтогенезу. Так, на третьому місяці ембріонального розвитку близько 1% овоцитів досягає стадії диктіотени, до четвертого місяця їхня кількість складає вже 20%, а до восьмого місяця - 90%.
З настанням статевої зрілості овоцити вступають у процес подальшого росту (так званий великий ріст). При цьому збільшуються розміри овоцита, у його цитоплазмі нагромаджується жовток, овоцит оточується прозорою зоною та променистим вінцем. Прозора зона має властивості оксифілії, її добре видно під світловим мікроскопом. Вона утворена складним комплексом глікопротеїнів та протеогліканів. Мікроворсинки фолікулярних клітин пронизують прозору зону та утворюють щілинні контакти з плазмолемою овоцита. Назовні від прозорої зони розташовані фолікулярні клітини променистої корони, які без різкої межі переходять у клітини яйценосного горбка (рис. 4.105, В).
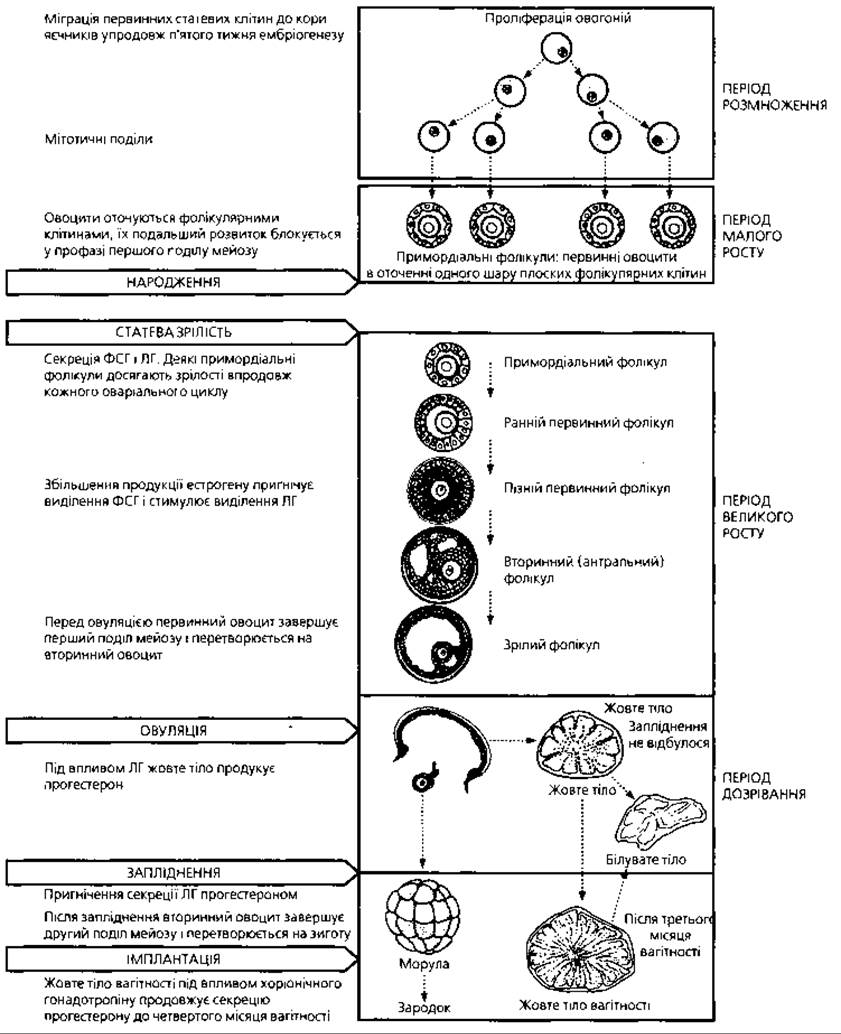
Рис. 4.108. Узагальнення процесів фолікулогенезу: ФСГ - фолікулостимулюючий гормон; ЛГ - лютеїнізуючий гормон; ХГ - хоріонічний гонадотропін
Період дозрівання овогенезу починається у зрілих фолікулах безпосередньо перед овуляцією, коли овоцити поновлюють мейоз, починаючи з метафази першого поділу дозрівання. Розблокування мейозу відбувається під дією лютропіну (ЛГ). Після першого поділу утворюються дві клітини: одна велика - вторинний овоцит (овоцит II порядку), у якій лишається майже вся Цитоплазма, і друга маленька - перше полярне тільце (полоцит І). Кожна з цих клітин отримує по 23 діади з хромосомного набору первинного овоцита. Другий поділ дозрівання починається відразу за першим, але він блокується на стадії метафази, завершується лише після пенетрації сперматозоїда через плазмолему вторинного овоцита. У результаті другого поділу мейозу знов утворюється маленька Клітина - друге полярне тільце (полоцит II) і велика - зріла яйцеклітина; обидві клітини отримують по 23 монади. Полярні, або редукційні, тільця містять близько 1% цитоплазми яйцеклітини. На стадії метафази другого поділу дозрівання овоцит вивільняється з яєчника внаслідок овуляції і дозрівання завершується у маткових трубах, після Запліднення.
Маткова (Фаллопієва) труба (tuba uterina, salpinx) (рис. 4.104,4.109, 4.110) - парний трубчастий орган, який починається від дна матки, проходить у складі широкої зв'язки до бічної поверхні малого тазу і закінчується біля яєчників. Довжина маткової труби 10-12 см, діаметр просвіту в ампульній частині 6-10 мм, на рівні перешийку - 3 мм, у матковій частині - 0,5-1 мм. Стінка маткової труби утворена трьома оболонками: слизовою, м'язовою та серозною. Слизова оболонка складається з епітеліальної та власної пластинок. Епітелій слизової оболонки - одношаровий призматичний, містить війчасті та секреторні клітини. Власна пластинка побудована з пухкої сполучної тканини. Слизова оболонка маткової труби утворює численні високі складки, які в ампульній частині мають назву торочок, або фімбрій.
М'язова оболонка складається із двох шарів гладких міоцитів - внутрішнього циркулярного і зовнішнього поздовжнього. У матковому відділі труби внутрішній шар стає поздовжнім, а зовнішній - циркулярним. Серозна оболонка складається із власної пластинки, побудованої з пухкої сполучної тканини, і мезотелію, що вкриває її, як і всі інші серозні оболонки.
Функції маткових труб полягають у транспорті статевих клітин до місця запліднення і зародка в матку, забезпеченні умов для капацитації сперматозоїдів, створенні середовища, сприятливого для запліднення. У матковій трубі перебігають перших 4-5 днів життя зародка. Транспорт зародка у матку відбувається завдяки перистальтиці м'язової оболонки, а також рухові війок епітеліоцитів.
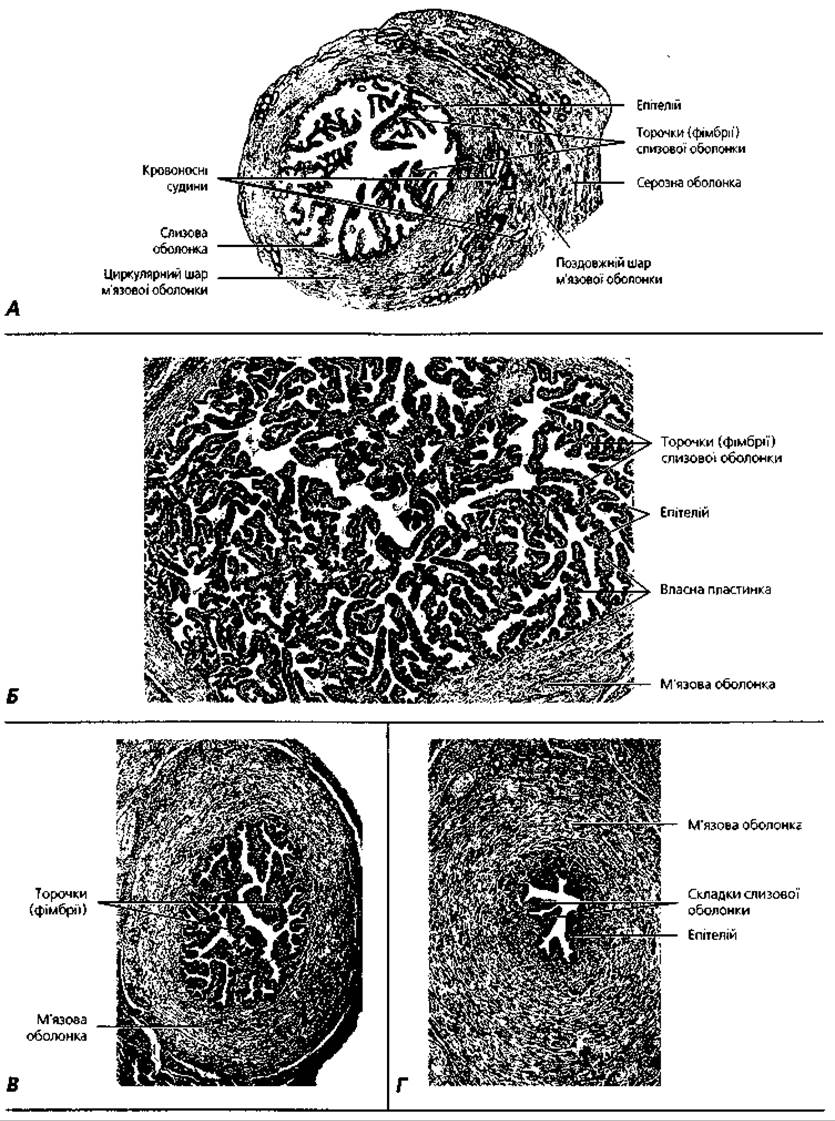
Рис. 4.109. Маткова (Фаллопієва) труба: А - напівсхематичне відтворення поперечного зрізу ампульної частини, х12; Б - світлова мікроскопія ампульної частини маткової труби 23-річної жінки, х30; В - ділянка перешийку, х30; Г - маткова частина труби, х30
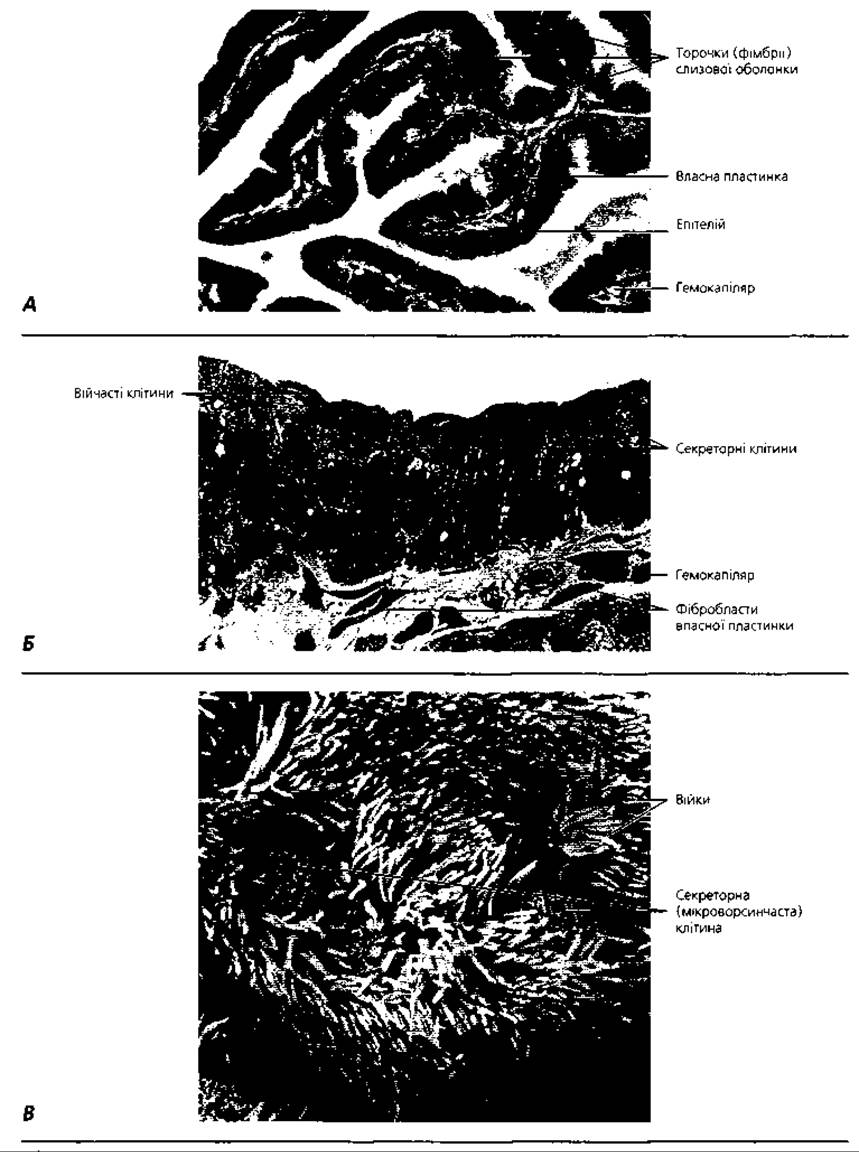
Рис. 4.110. Маткова труба; А - торочки (фімбрії) слизової оболонки, х280; Б - епітеліальне вистелення слизової оболонки, х1 200; В - сканована електронна мікроскопія поверхні епітеліального вистелення маткової труби, х7000
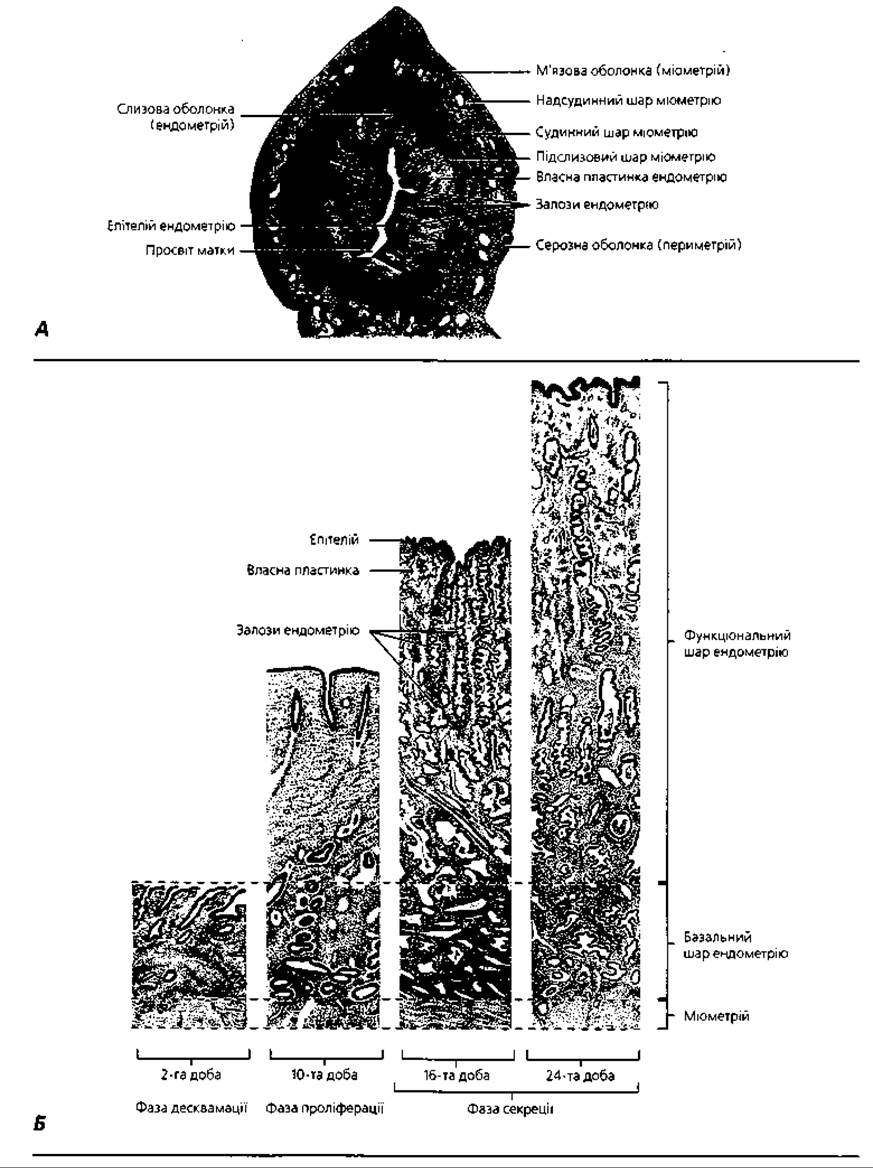
Рис. 4.111. Матка: А - напівсхематичне відтворення, х20; Б - динаміка морфологічних змін ендометрію упродовж менструального циклу, х30
Матка (Uterus) (рис. 4.104, 4.111, 4.113, А) - орган сплющеної грушоподібної форми, функція якого полягає у виношуванні плода. Розміщена матка в геометричному центрі малого тазу, між сечовим міхуром і прямою кишкою. У невагітному стані маса матки становить 70-100 г, розміри - 8x5x4 см. Стінка органа складається з трьох оболонок: ендометрію (слизової оболонки), міометрію (м'язової оболонки) та периметрію (серозної оболонки).
Ендометрій у віці до 10 років має товщину близько 0,15 мм, у статево зрілої жінки - до 2-3 мм. Ендометрій не утворює складок, просвіт матки має вигляд щілини. Складається ендометрій з двох пластинок - епітеліальної та власної. Епітелій ендометрію одношаровий високий призматичний (висота клітин 20-30 мкм); складається з війчастих і секреторних клітин. Епітеліальна пластинка утворює трубкоподібні вростання у власну пластинку, формуючи маткові залози. Власна пластинка слизової оболонки утворена пухкою сполучною тканиною.
Міометрій у дівчинки містить мало м'язових клітин. У статево зрілої жінки він добре розвинений, утворений гладкими міоцитами, що мають численні відростки. Гладкі міоцити міометрію утворюють три шари: підслизовий з косо-поздовжнім напрямком міоцитів; судинний - з переважним циркулярним напрямком м'язових клітин; надсудинний - з косо-поздовжньою орієнтацією міоцитів. Периметрій утворений пухкою сполучною тканиною, яку вкриває мезотелій.
Слизова оболонка шийки матки має низку особливостей. Подібно до піхви її поверхня вкрита багатошаровим плоским епітелієм. Канал шийки вистелений призматичним епітелієм, який продукує слиз. Слизова оболонка цервікального (шийкового) каналу утворює складки і два поздовжніх гребені. Крім того, тут є численні розгалужені залози, які теж продукують слиз. М'язова оболонка шийки матки утворена добре розвиненим циркулярним шаром гладких м'язових клітин, який формує так званий сфінктер матки.
Піхва (Vagina) (рис. 4.104, 4.113, Б, В) - це м'язово-фіброзна трубка довжиною 7-9 см, діаметром 2-3 см, що локалізується у малому тазі між сечівником і прямою кишкою. У стінці піхви розрізняють три оболонки: слизову, м'язову та адвентиційну. Слизова оболонка має дві пластинки - епітеліальну і власну. Епітелій піхви Cytology/practical/34.html">Багатошаровий плоский незроговілий, у якому розрізняють базальний, проміжний і поверхневий шари. Останній називають ще функціональним шаром, оскільки він піддається ритмічним змінам протягом менструального циклу. Клітини поверхневих шарів епітелію містять зерна кератогіаліну, багаті на глікоген. Розпад останнього під впливом мікробів призводить до утворення молочної кислоти, тому піхвовий слиз має кислу реакцію, що запобігає розвитку інфекції. Залоз у стінці піхви немає. Власна пластинка слизової оболонки формує сосочки, які вростають в епітелій, інфільтрована лімфоцитами. Еластичні волокна власної пластинки утворюють поверхневу та глибокі сітки.
М'язова оболонка піхви утворена поздовжніми пучками гладких міоцитів, між якими є невелика кількість циркулярно розташованих м'язових елементів. Адвентиційна оболонка побудована з пухкої сполучної тканини, яка сполучає піхву з сусідніми органами.
Зовнішні жіночі статеві органи включають Присінок піхви, малі та Великі соромітні Губи, Клітор. Присінок піхви вистелений багатошаровим плоским епітелієм. Сюди впадають дві великі присінкові залози (Бартолінові залози), які є альвеолярно-трубчастими за формою і продукують слиз.
Малі соромітні губи - це складки слизової оболонки, вкриті багатошаровим плоским зроговілим пігментованим епітелієм. Основу їх складає Пухка сполучна тканина, багата на еластичні волокна та Кровоносні судини, у якій містяться численні Сальні залози. Великі соромітні губи - складки шкіри зі значним вмістом жирової тканини, сальних та потових залоз. Зовнішня поверхня великих соромітних губ укрита волоссям.
Клітор за розвитком та будовою відповідає дорсальній частині прутня. Він складається з двох печеристих тіл та головки, яка вкрита багатошаровим плоским зроговілим епітелієм.
Грудні залози (mammae) за своїм походженням є видозміненими потовими залозами. Регуляція функції грудних залоз в основному здійснюється двома гормонами - пролактином (гормон аденогіпофіза), який стимулює біосинтез компонентів молока лактоцитами, та окситоцином (гормон паравентрикулярних ядер гіпоталамуса), який сприяє молоковіддачі. У свою чергу, секреція пролактину активується гіпоталамічним пролактоліберином і пригнічується пролактостатином. Детальну характеристику будови молочних залоз подано в розділі «Шкіра та її похідні».
Оваріально-Менструальний цикл. Циклічні зміни, що відбуваються у внутрішньому (функціональному) шарі ендометрію і проявом яких є щомісячні маткові кровотечі - менструації, отримали назву менструального циклу (рис. 4.106, 4.107). Менструальний цикл охоплює не лише функціональний шар ендометрію, але й увесь Організм жінки і залежить від циклічних змін у яєчнику, виділення ним естрогенів та прогестерону (оваріальний цикл). У зв'язку з цим щомісячні циклічні зміни в організмі жінки отримали назву оваріально-менструального циклу. У тварин аналогом менструальних циклів є так звані статеві цикли.
Тривалість менструального циклу вираховується від першого дня попередньої менструації до першого дня наступної. У більшості жінок тривалість циклу становить 28 днів. У ньому розрізняють кілька фаз.
У фазі десквамації або менструації (перша-четверта доба циклу), відбувається відторгнення функціонального шару ендометрію. Глибока частина ендометрію, що лишається після десквамації, має назву базального шару. Кровоносні судини ендометрію мають своєрідну будову: серед них розрізняють спіральні й прямі Артерії. Перші кровопостачають функціональний шар ендометрію, другі - базальний. Перед початком менструації у результаті зниження рівня прогестерону та відсутності впливу естрогенів спіральні артерії спазмуються, зменшується приплив крові у поверхневий шар ендометрію (настає його ішемія) і спостерігаються некротичні зміни. Некротизова- на частина ендометрію відторгається, судини кровоточать до кінця четвертої доби. Втрата крові під час менструації становить 50-200 мл. Менструальна кров не згортається, у ній багато лімфоцитів.
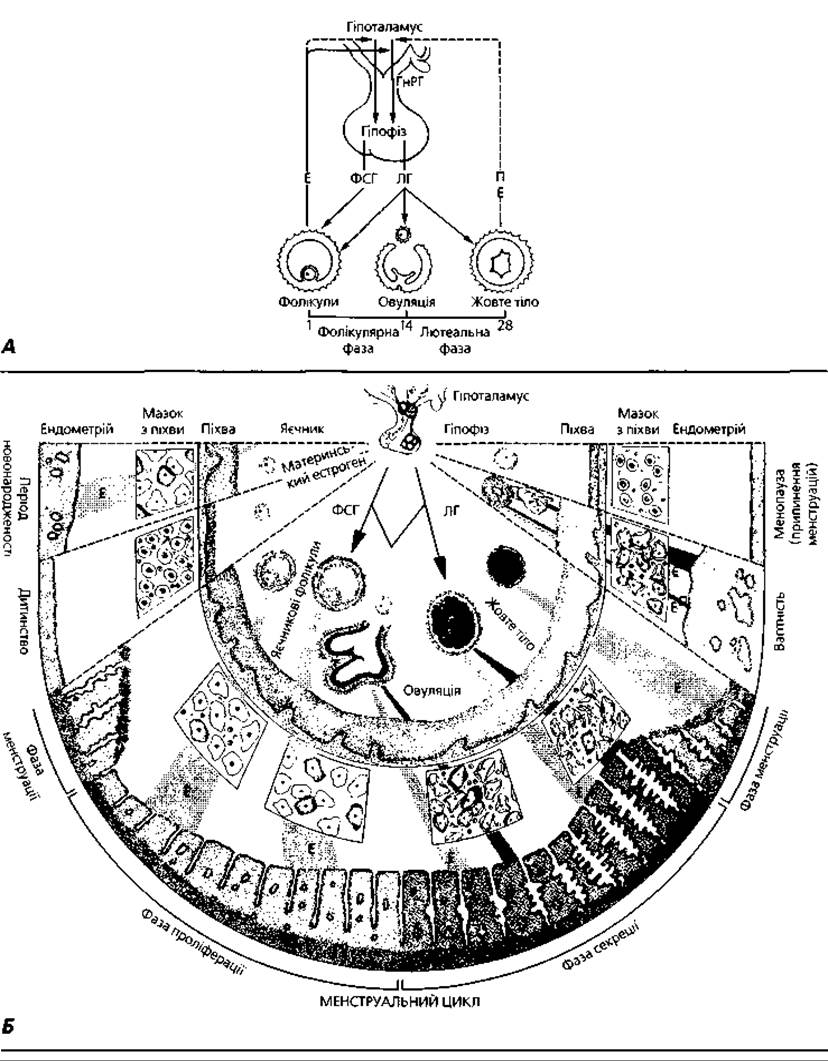
Рис. 4.112. Гормональна регуляція жіночої статевої системи: А - схема взаємодії гіпоталамуса, гіпофіза та яєчників: суцільними стрілками показано стимулювання, розірваними стрілками - зворотний від'ємний зв'язок; Б - оваріально-менструальний цикл та функціональні зміни жіночих статевих органів під впливом гормонів гіпоталамуса і гіпофіза: ГнРГ - гонадотропін-релізинг гормон; ЛГ - лютеїнізуючий гормон; ФСГ - фолікулостимулюючий гормон; Е - естроген; П - прогестерон
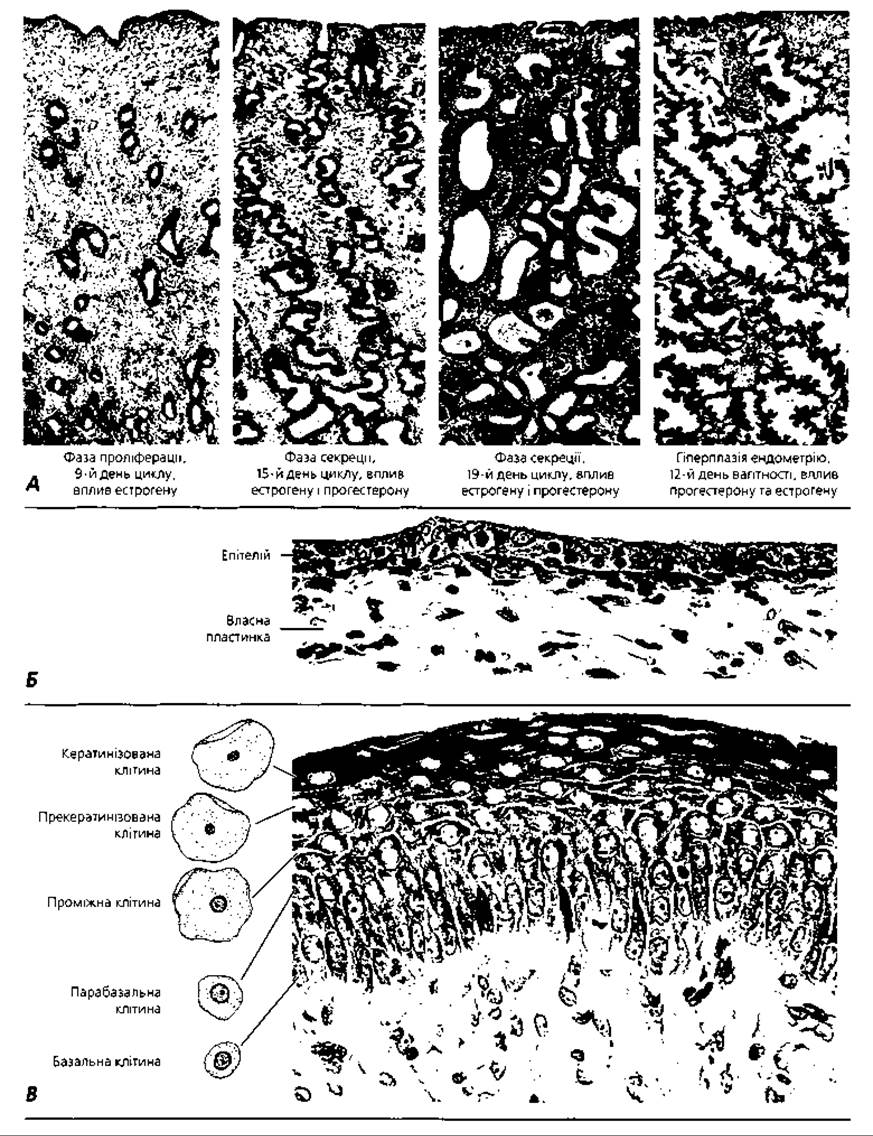
Рис. 4.113. Гормональний вплив на морфологію ендометрію та слизової оболонки піхви: А - світлова мікроскопія ендометрію у різних фазах менструального циклу та під час вагітності; Б - слизова оболонка піхви за відсутності впливу естрогену; В - слизова оболонка піхви, стимульована естрогеном
Фаза проліферації (фолікулярна, постменструальна) охоплює п'яту-чотирнадцяту добу циклу. Вона починається з ростом фолікулів і продукцією ними естрогенів. Останні забезпечують процес регенерації функціонального шару ендометрію. За рахунок епітелію дна маткових залоз, які зберігаються після відторгнення функціонального шару, відбувається оновлення епітеліального покриву слизової оболонки. Товщина ендометрію у цій фазі збільшується у два-три рази і досягає 2-3 мм. Клітини епітелію унаслідок посиленої проліферації часто нашаровуються одна на одну. Секреторні клітини продукують невелику кількість водянистого слизу, серед них розсіяні невеликі групи війчастих клітин. Маткові залози вузькі й прямі. У стромі міститься невелика кількість основної міжклітинної речовини, рідко трапляються лейкоцити. Ця фаза, які попередня, забезпечується дією естрогенів. У кінці цієї фази в яєчнику відбувається овуляція.
Фаза секреції (лютеїнова, пременструальна) охоплює 15-28 добу циклу. Ендометрій потовщується у два рази порівняно з попередньою фазою, але не за рахунок розмноження клітин, як у постменструальній фазі, а в результаті набряку, нагромадження секрету в залозах і збільшення об'єму клітин строми. Маткові залози стають звивистими, продовжують виділяти велику кількість секрету, у їхніх клітинах з'являється значна кількість глікогену. У функціональному шарі ендометрію у фазі секреції можна розрізнити дві зони: поверхневу компактну і глибоку губчасту (розширені залози надають цій зоні губчастого вигляду). Утворення поверхневої і глибокої зон відбиває процес підготовки ендометрію до сприйняття зародка, тобто до імплантації. Фаза секреції зумовлена дією прогестерону. Останній продукується жовтим тілом, що утворюється на місці постовуляторного фолікула під дією лютропіну гіпофіза. Продукцію прогестерону стимулює також пролактин. Прогестерон сприяє стабілізації набряклого ендометрію, не дає йому відшаровуватися. Якщо вагітність не настає і жовте тіло гине, зниження рівня прогестерону призводить до відторгнення функціонального шару ендометрію і початку менструальної фази. За відсутності впливу прогестерону розблоковується процес росту фолікулів яєчника, які починають продукувати естрогени. Останні стимулюють регенерацію і проліферацію функціонального шару ендометрію, тобто цикл повторюється.
Циклічність функціонування жіночої статевої системи зумовлена особливостями секреції лютеїнізуючого гормону (лютропіну) гіпофізом. У чоловічому організмі як фолікулостимулюючий (фолітропін), так і лютеїнізуючий гормони продукуються одночасно і рівномірно, а в жінок виділення лютропіну відбувається періодично, коли Гіпофіз викидає у кров підвищену його кількість, достатню для овуляції і розвитку жовтого тіла (так звана овуляторна квота лютропіну). Гіпоталамічна регуляція цієї функції аденогіпофіза здійснюється двома центрами. Один з них (нижчий) локалізований у туберальних ядрах медіобазального гіпоталамуса. Він активує передню частку гіпофіза до безперервної тонічної секреції обох гонадотропінів. У такому разі кількість продукованого лютропіну забезпечує лише секрецію естрогенів яєчниками і тестостерону яєчками. Другий (вищий, або овуляторний) центр локалізований у преоптичній ділянці медіобазального гіпоталамуса. Він модулює діяльність нижчого центру, в результаті чого останній активує гіпофіз до викидання у кров великої кількості (овуляторної квоти) лютропіну.
За відсутності впливу андрогену вищий центр зберігає здатність періодично збуджувати діяльність нижчого центру, що і властиво жіночому організмові. У зародка чоловічої статі завдяки продукції чоловічого статевого гормону овуляторний центр маскулінізується. У кінці внутрішньоутробного періоду розвитку овуляторний центр гіпоталамуса втрачає здатність модифікуватися за чоловічим типом.
Розвиток жіночої статевої системи. Статева система осіб обох статей розвивається спочатку за єдиною схемою і в тісному контакті з розвитком видільної системи. Закладка гонад виникає у зародка на четвертому тижні розвитку в вигляді потовщення целомічного епітелію на поверхні первинної нирки. Ці потовщення мають назву статевих валиків. Від мезонефральної (Вольфової) протоки відщеплюється розташована паралельно до неї парамезонефральна (Мюллерова) протока. З верхніх частин парамезонефральних проток утворюються яйцеводи, а з нижніх - матка і піхва. У процесі розвитку жіночої статевої системи мезонефральні протоки редукуються, перетворюючись в рудиментарні протоки придатків яєчників. Крім целомічного епітелію і мезенхіми окремим джерелом розвитку статевих залоз є первинні статеві клітини - гоноцитобласти, які мають екстрагонадне походження і вперше виявляються у первинній смужці і в ділянці кореня алантоїса, потім мігрують в ендодерму жовткового мішка, ендодерму середньої кишки, в дорсальну брижу, звідки через целомічне вистелення і зачатковий епітелій потрапляють у статеві валики, тобто в зачатки гонад. Гоноцити в зачатку жіночої гонади перетворюються на овогонії. Диференціація яєчників відбувається пізніше, ніж яєчок, і стає помітною лише наприкінці 7-8-го тижня ембріогенезу.
Терміни для запам'ятовування
1. Яєчники. 2. Маткові труби. 3. Матка. 4. Піхва. 5. Грудні залози. 6. Поверхневий епітелій. 7. Білкова оболонка. 8. Кіркова речовина яєчника. 9. Мозкова речовина яєчника. 10. Інтерстиційні клітини. 11. Примордіальний фолікул. 12. Первинний фолікул. 13. Вторинний (пухирчастий, антральний) фолікул. 14. Зрілий (третинний, Граафів) фолікул. 15. Жовте тіло. 16. Білувате тіло. 17. Атретичний фолікул. 18. Порожнина фолікула. 19. Зернистий шар фолікула (гранульоза). 20. Яйценосний горбок (кумулюс). 21. Прозора зона. 22. Промениста корона. 23. Внутрішня тека. 24. Зовнішня тека. 25. Текоцити. 26. Овуляція. 27. Естрогени. 28. Зернисті лютеоцити. 29. Тека-лютеоцити. 30. Циклічне (менструальне) жовте тіло. 31. Жовте тіло вагітності. 32. Прогестерон. 33. Атрезія фолікулів. 34. Гонадокринін. 35. Релаксин. 36. Овогенез. 37. Гоноцити. 38. Овогонії. 39. Прелептотенні овоцити. 40. Диктіотена. 41. Первинний овоцит. 42. Вторинний овоцит. 43. Перше полярне тільце (полоцит І). 44. Зріла яйцеклітина. 45. Друге полярне тільце (полоцит II). 46. Ендометрій. 47. Маткові залози. 48. Функціональний шар. 49. Базальний шар. 50. Міометрій. 51. Периметрій. 52. Шийка матки. 53. Залози шийки матки. 54. Присінок піхви. 55. Залози присінка (Бартолінові). 56. Малі соромітні губи. 57. Великі соромітні губи. 58. Клітор. 59. Оваріально-менструальний цикл. 60. Фаза десквамації (менструальна). 61. Прямі та спіральні артерії. 62. Фаза проліферації (фолікулярна, постменструальна). 63. Овуляторна квота лютропіну. 64. Мезонефральна (Вольфова) протока. 65. Парамезонефральна (Мюллерова) протока.
Последнее обновление: 05/02/2024
Редакционная и учебная адаптация: Данный материал сведен на основе первоисточника/оригинального текста. Команда проекта осуществила редакционную обзорную обработку, исправление технических неточностей, структурирование разделов и адаптацию содержания к учебному формату.
Что было обработано:
- устранение форматных дефектов (OCR-ошибки, разрывы структуры, дефектные символы);
- редакционное упорядочивание содержания;
- унификация терминов в соответствии с академическими источниками;
- проверка соответствия фактических утверждений текста первоисточнику.
Все упоминания об авторе, годе издания и происхождении первичного текста сохранены в соответствии с источником.