Гістологія людини - О.Д. Луцик 2003
Цитологія
Ядро. Репродукція клітин
Ядро (Nucleus) - важлива складова частина клітини. Разом із цитоплазмою ядро утворює єдину інтегровану систему, яка знаходиться у стані динамічної рівноваги. Клітина не може довго існувати без ядра (швидко гине у разі його видалення - енуклеації), але і ядро без цитоплазми не здатне до самостійного життя. Термін "ядро" належить Р. Броуну, який уперше застосував його у 1833 р., описуючи рослинні клітини.
Ядро виконує дві групи загальних функцій. Перша пов'язана зі збереженням генетичної (спадкової) інформації серед клітинних поколінь. Це такі функції: підтримання постійної структури ДНК за допомогою так званих репараційних ферментів, які можуть відновити молекулу ДНК після її ушкоджень (у тому числі радіаційних); редуплікація молекул ДНК (тобто якісне і кількісне подвоєння генетичного матеріалу); розподіл генетичного матеріалу міждочірніми клітинами під час мітозу; рекомбінація генетичного матеріалу в процесі мейозу. Друга група ядерних функцій стосується реалізації генетичної інформації (рис. 1.15), тобто полягає у створенні апарату білкового синтезу. До цих функцій належать синтез усіх видів РНК (інформаційної, транспортної, рибосомної), а також побудова рибосом.
Усі клітини людського організму містять ядро, за винятком високоспеціалізованих клітин крові - еритроцитів, що втрачають ядро у процесі свого розвитку і є без'ядерними. Переважна більшість клітин містить одне ядро, але бувають двоядерні клітини (20 % клітин печінки є двоядерними), а також багатоядерні (наприклад, остеокласти - клітини кісткової Тканини).
За формою ядра найчастіше бувають сферичні, але можуть мати й іншу форму - паличкоподібну, бобоподібну, кільцеву, сегментовану. Форма ядра залежить від форми клітини (видовжені клітини гладких м'язів мають видовжене паличкоподібне ядро); від кількості включень (ядро жирової клітини набуває сплющеної форми під впливом великої жирової краплі, що займає майже всю клітину); розташування органел (форма ядра моноцита бобоподібна завдяки розташуванню у місці його заглибини центросоми).
Ядро локалізується завжди у певному місці клітини. Наприклад, у циліндричних клітинах шлунка, кишки воно займає базальне положення. Розміри ядер від 3-4 до 40 мкм. Кожний тип клітини має своє постійне співвідношення між об'ємом ядра і цитоплазми. Ця константа носить назву індексу Гертвіга. Згідно зі значеннями цього індексу клітини поділяють на ядерні (з великим індексом Гертвіга) та цитоплазматичні (з малим індексом Гертвіга).
Ядро може бути в двох станах - мітотичному (під час поділу) та інтерфазному (між поділами). Інтерфазне ядро називають також метаболічним, що підкреслює його функціональний стан. У живій клітині інтерфазне ядро виглядає оптично порожнім, видно лише ядерце. Структури ядра у вигляді ниточок, зерняток у живій клітині можна спостерігати лише під час дії на неї ушкоджувальних агентів, коли клітина переходить у стан так званого паранекрозу (стан на межі життя і смерті). З цього стану клітина може або повернутися до нормальної життєдіяльності, або загинути. Морфологічно розрізняють такі зміни ядра у разі загибелі клітини: каріопікноз (ущільнення), каріорексис (розпад), каріолізис (розчинення).
Class="center">
Рис. 1.15. Selection/27.html">Реалізація генетичної інформації у клітині: А - схема синтезу та секреції білків ацинарною клітиною підшлункової залози; Б, В - Транскрипція генетичної інформації у ядрі та трансляція генетичного коду у послідовність амінокислот пептидного ланцюга у цитоплазмі клітини
На фіксованому і зафарбованому препараті у складі інтерфазного ядра розрізняють ядерну оболонку, Хроматин, ядерце та каріоплазму (рис. 1.16).
Ядерна оболонка. Ядра всіх еукаріотичних клітин оточені оболонкою - нуклеолемою. Ядерна оболонка складається з двох біологічних мембран - зовнішньої і внутрішньої, відокремлених перинуклеарним простором шириною 20-60 нм. Кожна з мембран має товщину 7-8 нм і морфологічно подібна до інших клітинних мембран. Таким чином, ядерна оболонка нагадує порожнистий двошаровий мішок, що відокремлює вміст ядра від цитоплазми. Зовнішня мембрана ядерної оболонки має низку структурних особливостей, що дає змогу віднести її до мембранної системи ендоплазматичної сітки. Наприклад, на зовнішній ядерній мембрані здебільшого розташовується невелика кількість рибосом. Існує багато даних про безпосередній перехід зовнішньої ядерної мембрани у систему канальців гранулярної ендоплазматичної сітки. Зовнішня ядерна мембрана більшості тваринних і рослинних клітин не є рівною і може утворювати різного розміру вирости у вигляді пухирців або довгих трубчастих утворів у бік цитоплазми. З боку каріоплазми до внутрішньої ядерної мембрани прилягає фібрилярний шар, так звана ядерна ламіна, побудована з проміжних філаментів. Ядерна ламіна пов'язана з хромосомним матеріалом ядра.
Ядерна оболонка не є суцільною. Її характерними структурами є специфічні отвори, що мають назву ядерних пор. Пори утворюються за рахунок злиття двох ядерних мембран і є округлими наскрізними перфораціями діаметром 80-90 нм (рис. 1.17). Їх заповнюють складноорганізовані глобулярні та фібрилярні структури, які разом з мембранною перфорацією утворюють так звану поросому. Остання побудована із трьох рядів гранул, по вісім у кожному ряді; діаметр гранули 25 нм. Гранули розташовані на межі отвору в ядерній оболонці: один ряд лежить з боку ядра, другий - з боку цитоплазми, третій - у центральній частині пори. У центрі пори розташована центральна гранула. Від гранул відходять фібрилярні білкові структури, які сходяться у центрі, утворюючи так звану діафрагму пори. Розмір ядерних пор для кожного виду клітин є величиною сталою. Число ж пор на одиницю поверхні ядра може змінюватися залежно від функціонального стану клітини, її метаболічної активності: чим вона вища, тим більша густина пор на поверхні нуклеолеми.
Ядерна оболонка виконує низку важливих функцій. Перша з них - бар'єрна: ядерна оболонка відокремлює вміст ядра, його генетичний матеріал від цитоплазми, обмежує вільний доступ у ядро та вихід із нього різних речовин. Друга функція - регуляція транспорту макромолекул між ядром і цитоплазмою. Наприклад, відомо, що гістони та інші негістонові білки після синтезу в цитоплазмі мігрують у ядро. Відомий також і зворотний процес транспорту речовин з ядра в цитоплазму. Це насамперед стосується транспорту РНК і рибонуклеопротеїнів, що утворюються виключно в ядрі. Транспорт високомолекулярних сполук, а також рибосом через ядерну оболонку здійснюється через пори.

Рис. 1.16. Ядро клітини: А - об'ємна реконструкція ультраструктурної організації ядра; Б - електронна мікрофотографія ядра секреторної клітини підшлункової залози, х12 000

Рис. 1.17. Ультраструктура ядерної оболонки: А - об'ємна реконструкція фрагмента ядерної оболонки з поросомами; Б - схема молекулярної організації поросоми; В - електронна мікрофотографія фрагмента ядерної оболонки з прилеглими ділянками цитоплазми та каріоплазми, х45 000
Одна із суттєвих функцій ядерної оболонки - участь у підтриманні внутрішньої структури ядра в інтерфазі шляхом фіксації хромосомного матеріалу до внутрішньої ядерної мембрани. Існують дані про переважний зв'язок із ядерною оболонкою гетерохроматинових ділянок інтерфазних хромосом. Ще з класичних цитологічних описів відомо про те, що частина хроматину локалізується на периферії ядра. Цей, так званий, периферійний хроматин структурно пов'язаний із внутрішньою ядерною мембраною. Крім периферійного хроматину з ядерною оболонкою контактують прицентромерні, теломерні та ядерцеві ділянки гетерохроматину, статеві Хромосоми тощо. Отже, можна вважати, що кожна деконденсована в інтерфазі хромосома "заякорена" на ядерній оболонці за допомогою гетерохроматинових ділянок і таким чином її положення стає фіксованим у просторі ядра.
Хроматин. На фіксованому і фарбованому препараті в інтерфазному ядрі видно зерна, грудочки, що добре фарбуються основними барвниками. Цей компонент ядра вперше описав Вальтер Флемінгу 1881 р. і назвав хроматином (від грецького "хрома" - колір, барва). Хроматин (рис. 1.18) - це основна Структура інтерфазного ядра, яка зумовлює специфічний для кожного типу клітин хроматиновий малюнок ядра. Цей малюнок є ніби власною печаткою клітини, яка дає змогу розпізнавати різні види клітин. Хроматин є структурним аналогом хромосом, які можна бачити лише підчас мітозу. Хімічний склад хроматину такий, як і хромосом: основою є молекула ДНК, що оточує білки-гістони. Крім того, у хроматині виявлено невелику кількість РНК - продуктів процесу транскрипції. Співвідношення названих хімічних компонентів у хроматині (ДНК: білок: РНК) як 1:1,3:0,2.
Розрізняють два різновиди хроматину: гетерохроматин та еухроматин. Перший відповідає конденсованим під час інтерфази ділянкам хромосом; він є функціонально неактивним. Цей хроматин добре фарбується, саме його можна бачити на гістологічному препараті. Гетерохроматин поділяється на структурний (це ділянки хромосом, що постійно конденсовані) та факультативний (може деконденсуватись і переходити в еухроматин). Еухроматин відповідає деконденсованим в інтерфазі ділянкам хромосом. Це робочий, функціонально активний хроматин. Він не фарбується, його не видно на гістологічному препараті. Під час мітозу весь еухроматин конденсується і включається до складу хромосом.
В окремих випадках ціла хромосома у період інтерфази може залишатись у конденсованому (тобто гетерохроматинізованому) стані, мати вигляд грудочки гетерохроматину. Наприклад, одна з Х-хромосом у соматичних клітинах жіночого організму підлягає гетерохроматинізації на початкових стадіях ембріогенезу (під час дроблення) і не функціонує. Уперше цей хроматин був описаний М. Барром і Л. Бертрамом у 1949 р. й отримав назву статевого хроматину, або тілець Барра. У різних клітинах статевий хроматин має різний вигляд. Наприклад, у нейтрофільних лейкоцитах він виглядає як барабанна паличка, що випинається від поверхні одного із сегментів ядра. В епітеліальних клітинах слизової оболонки ротової порожнини статевий хроматин виглядає як добре помітна напівсферична грудочка гетерохроматину, прикріплена до внутрішньої ядерної мембрани. Той факт, що статевий хроматин є не що інше як гетерохроматинізована одна з Х-хромосом, установила вперше англійська дослідниця Мері Лайон, на честь якої процес переходу Х-хромосоми у стан гетерохроматину було названо лайонізацією. Визначення статевого хроматину використовується для установлення генетичної статі організму (в судовій медицині, акушерстві), а також для визначення кількості Х-хромосом у каріотипі індивіда (вона дорівнює кількості тілець статевого хроматину +1).
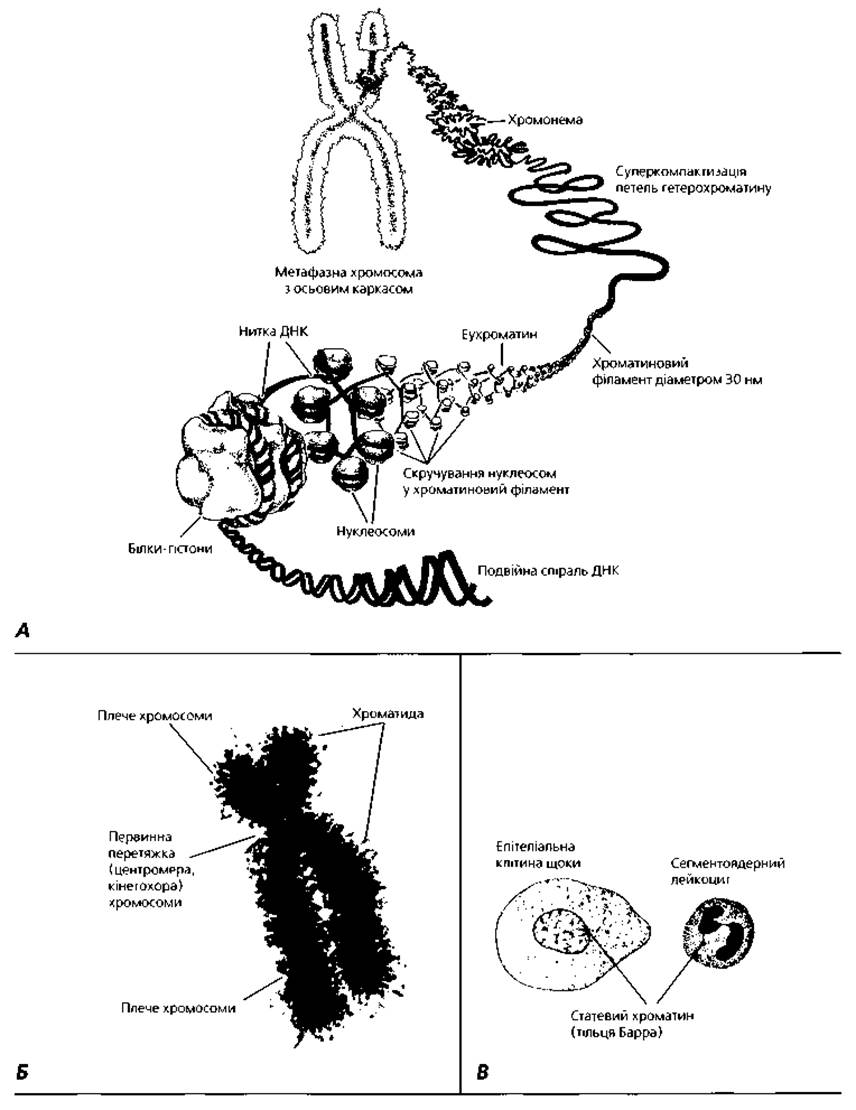
Рис. 1.18. Хроматин та хромосоми: А - взаємозв'язок між структурою хроматину та організацією хромосом; Б - електронна мікрофотографія 12-ї Хромосоми людини у метафазі, х60 500; В-локалізація статевого хроматину у ядрі епітеліоцита слизової оболонки Щоки та сегментоядерного лейкоцита жінки
На ультраструктурному рівні у складі інтерфазного гетерохроматину виявляються філаменти завтовшки близько 30 нм, які побудовані з ниток товщиною 10 нм. Основу останніх становить молекула ДНК у комплексі з пістонами, що має вигляд намиста. Кожна намистина, що має назву нукпеосоми, складається із фрагмента подвійної спіралі ДНК, у якій міститься 146 пар основ, закрученого навколо білкової серцевини (кору), побудованої з восьми молекул гістонів. Нуклеосоми зумовлюють суперкомпактизацію молекул ДНК у цих ділянках. Крім того, електронна мікроскопія виявляє в ядрі структури, які вважають продуктами транскрипційної активності хроматину. До них належать перихроматинові фібрили товщиною 3-5 нм, перихроматинові гранули діаметром 45 нм та інтерхроматинові гранули діаметром 20-25 нм.
Ядерце (рис. 1.19) - це найщільніша структура ядра (щільність ядерця у 1,5 разу перевищує щільність ядра), яка добре помітна у живій нефарбованій клітині. Форма ядерець сферична, розмір 1-5 мкм. Ядерце добре фарбується, особливо основними барвниками. Це пов'язано з наявністю у ньому великої кількості РНК, концентрація якої тут у два-вісім разів вища, ніж у ядрі, і в два-три рази перевищує концентрацію у цитоплазмі. Кількість ядерець звичайно відповідає кількості хромосомних наборів. Тому в диплоїдних клітинах їх буває два на ядро.
Ядерце - це не самостійна структура, а похідне хромосом, що містять так звані ядерцеві організатори, розташовані у зонах вторинних перетяжок. Останні являють собою локуси хромосом з найвищою концентрацією та активністю синтезу РНК в інтерфазі. Ядерце - це місце утворення рибосомних РНК і субодиниць рибосом. ДНК ядерцевого організатора складається із множинних копій генів рРНК: на кожному з них синтезується попередник рРНК, який у зоні ядерця зв'язується з білком; так утворюються субодиниці рибосом.
Субмікроскопічна будова ядерця характеризується наявністю двох основних структур; гранул діаметром 15-20 нм і фібрил товщиною 6-8 нм. Гранулярний компонент часто розташовується у вигляді нитки (нуклеолонеми) товщиною 0,2 мкм. Фібрилярний компонент ядерця - це рибонуклеопротеїнові тяжі, попередники рибосом, а гранули - субодиниці рибосом, що дозрівають. Навколо ядерця знаходиться компактна зона приядерцевого гетерохроматину. Конденсований хроматин також розміщений між петлями нуклеолонеми.

Рис. 1.19. Ядерце: А - електронна мікрофотографія ядра клітини з ядерцем. Стрілками показано приядерцевий хроматин, головками стрілок - перинуклеарний простір, х 26 000; Б - ультраструктура ядерця клітини кори надниркової залози людини: NО, ядерцевий організатор; PF, фіброзна частина; PG, зерниста частина; NAC, приядерцевий хроматин; NE, ядерна оболонка; С - Цитоплазма
Каріоплазма - це рідка частина ядра, в якій містяться ядерні структури, аналог гіалоплазми у цитоплазматичній частині клітини. Після видалення з ядер ДНК, РНК, бетонових та мембранних білків ядра не втрачають своєї цілісності, незважаючи на майже повну втрату хроматину і мембран. Під електронним мікроскопом у таких ядрах виявлено поросоми разом з фібрилярним периферійним шаром, ядерцеві фібрили та численні фібрили, що лежать у міжхроматинових ділянках. Весь комплекс цих структур, побудований з негістонових білків, отримав назву білкового ядерного матриксу, який можна вважати аналогом цитоматриксу цитоплазми. До білкового ядерного матриксу належать ядерна ламіна, компоненти ядерної оболонки, ядерця, каріоплазми. Матрикс ядра відіграє важливу роль як у підтриманні загальної структури інтерфазного ядра, так і у процесах його метаболізму.
Репродукція клітин. Розмноження клітин - одне з найважливіших біологічних явищ і є проявом загальної закономірності, яка полягає у тому, що неодмінною умовою існування біологічних систем протягом досить довгих проміжків часу є їхня репродукція. Розмноження клітин здійснюється шляхом поділу вихідної клітини. Це положення є одним з основних у клітинній теорії.
Клітинний цикл. Весь період існування клітини від поділу до поділу або від поділу до смерті називають клітинним циклом (рис. 1.20). У дорослому організмі вищих хребетних тварин і людини клітини різних органів і тканин мають різну здатність до поділу і, таким чином, різний клітинний цикл. Поділові клітини передує подвоєння її хромосомного набору, а отже, і кількості ДНК. Це подвоєння відбувається у певному періоді інтерфази і лише після цього процесу починається поділ клітини. Нещодавно відкрито білок циклін, який регулює Вступ клітини у мітоз. Зменшення швидкості синтезу цикліну збільшує тривалість інтерфази.
Весь клітинний цикл поділяють на чотири періоди: власне мітоз (М), пресинтетичний (G1, синтетичний (S) та постсинтетичний (G2) періоди інтерфази. Літера G походить від англійського слова "дар" - проміжок, інтервал. У періоді G1 починається підготовка клітини до синтезу ДНК, який відбувається у наступному S-періоді. Якщо в експерименті зумовити пригнічення синтезу білка або РНК у G1-пepioдi, то перехід клітини в S-період блокується. У періоді G1синтезуються Ферменти, необхідні для утворення попередників ДНК, метаболізму РНК і білка.
У синтетичному S-періоді (абревіатура 5 походить від англійського слова "synthesis" - синтез) подвоюється кількість ДНК і, відповідно, число хромосом. S-період є вузловим у клітинному циклі. Тільки та клітина, яка пройшла цей період, може вступати у мітоз. Рівень синтезу РНК у G2-пepioдi зростає відповідно зі збільшенням кількості ДНК і досягає свого максимуму в S-пepiоді. У S-періоді також відбувається подвоєння центріолей клітинного центру.
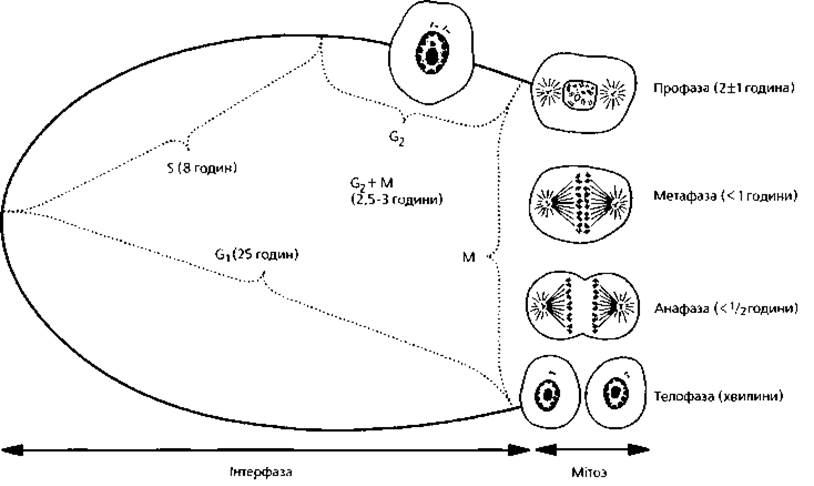
Рис. 1.20. Мітотичний цикл клітини кісткової тканини: G1 - пресинтетичний період; S - синтетичний період; G2 - постсинтетичний період; G0 - вихід з циклу, смерть клітини; М - мітоз
Постсинтетичний період G2 циклу ще називають премітотичним, оскільки він має велике значення для наступного поділу. У цьому періоді відбувається синтез ІРНК, необхідної для проходження мітозу. Крім того, синтезується РНК рибосом, що визначають поділ клітини. У цей же час синтезуються білки мітотичного веретена - тубуліни. У кінці G2-пepioдy, або з початком мітозу, Синтез РНК різко знижується і повністю припиняється під час мітозу. Синтез білка під час мітозу також знижується, а потім досягає максимуму в G2-пepioдli, повторюючи загалом характер синтезу РНК.
Описаний клітинний цикл притаманний клітинам, що зберігають здатність до поділу. Але водночас в організмі є клітини, які ніби виходять із циклу. Це так звані клітини G0-пepioдy. Вони не проходять S-періоду і не поділяються, перебуваючи у стані спокою. Це клітини, що тимчасово або остаточно перестали поділятися. Існує кілька типів клітин G0-періоду. До першого типу належать стовбурові клітини різних тканин (наприклад кровотворні). Це малодиференційовані клітини, які, зберігаючи здатність до поділу, на довгий час виходять з циклу, вступаючи в G0-період. До другого типу належать клітини, які, втрачаючи здатність до поділу, спеціалізуються, проходять диференціацію. Серед клітин цього типу можна розрізнити два підтипи. Одні клітини, ставши на шлях диференціації, назавжди втрачають здатність до поділу, деякий час функціонують і потім гинуть. Прикладом таких клітин можуть бути зрілі клітини крові, клітини епідермісу тощо. Клітини другого підтипу після диференціації не втрачають здатності до поділу і, коли потрібно, можуть повертатися у цикл. Наприклад, клітини печінки за умови видалення частини органа починають синтезувати ДНК і вступають у мітоз. Третій тип клітин G0-пepioдy - це високодиференційовані клітини, які у дорослому організмі незворотно втрачають здатність до поділу і можуть мати термін існування, який дорівнює термінові життя цілого організму. Це, наприклад, Нервові клітини.
Мітоз (mitosis), каріокінез, або непрямий поділ, є універсальним способом розмноження клітин. Сама назва "мітоз" походить від грецького слова "мітос" - нитка, під яким розуміють нитки хромосом. Під час мітозу внаслідок конденсації еухроматину в ядрі стають видимими вже редупліковані хромосоми, які за допомогою мітотичного апарату розходяться до полюсів клітини, після чого поділяється клітинне тіло. Для зручності вивчення мітотичного поділу у ньому розрізняють чотири фази: профазу, метафазу, анафазу, тело-фазу (рис. 1.21,1.22,1.23).
Профаза характерна тим, що хроматиновий малюнок інтерфазного ядра зникає, а натомість з'являються ниткоподібні щільні тільця, які добре фарбуються і мають назву хромосом. Спочатку вони відокремлені одна від одної не дуже чітко (рання профаза, або стадія щільного клубка), а в кінці профази окремі хромосоми вже добре видно (пізня профаза, або стадія пухкого клубка). Оскільки редуплікація ДНК відбулася в S-періоді інтерфази, то кожна хромосома вже є подвійною структурою - так званою Д-хромосомою. Але у профазі ця подвійність ще не проявляється через щільне прилягання сестринських хромосом (або хроматид) одна до одної. У кінці профази або на початку наступної стадії - метафази - зникає ядерце внаслідок інактивації рибосомних генів у зоні ядерцевих організаторів. Одночасно руйнується ядерна оболонка, яка розпадається на фрагменти, а потім на дрібні мембранні пухирці. Крім того, зменшується кількість елементів гранулярної ендоплазматичної сітки (як цистерн, так і рибосом), що відповідає значній редукції рівня синтезу білка.
Під час профази відбувається ще один дуже важливий для поділу клітини процес - формування веретена поділу внаслідок розходження центріолей до полюсів клітини. До кожного полюсу відходить подвійна центріоль - диплосома. З розходженням диплосом починають формуватися мікротрубочки, які відходять від периферійних ділянок материнської центріолі кожної диплосоми. Сформований апарат поділу в тваринних клітинах має веретеноподібну форму і складається з двох центросфер з центріолями всередині них і волокон веретена, яке лежить між ними. Усі ці три структури побудовані з мікротрубочок, які утворюються внаслідок полімеризації тубулінів у зоні центріолей. Крім того, центрами організації мікротрубочок веретена є спеціальні структури хромосом - кінетохори, розташовані в зонах первинних перетяжок. Внаслідок цього у веретені поділу утворюється два типи волокон: центральні, що йдуть від полюсів до центру веретена, і кінетохорні, або хромосомні, які сполучають хромосоми з одним із полюсів клітини і виникають пізніше.
Метафаза починається від того моменту, коли хромосоми, вільно розташовані в цитоплазмі після розчинення ядерної оболонки, починають рухатися до екватора клітини. Цей процес має назву метакінезу. У середині метафази хромосоми, вишикувавшись в екваторіальній площині веретена, утворюють так звану метафазну пластинку, або материнську зірку, в якій центромерні ділянки хромосом обернені до центру, а їхні плечі - до периферії. У кінці метафази можна побачити, що кожна хромосома складається із двох сестринських хроматид, плечі яких розташовані паралельно. їх розділяє щілина, і вони лишаються з'єднаними лише у ділянці центромери. Метафаза займає третину часу всього мітозу.

Рис. 1.21. Схематичне відтворення морфології фігур мітозу рослинних клітин (корінець цибулі), x 500
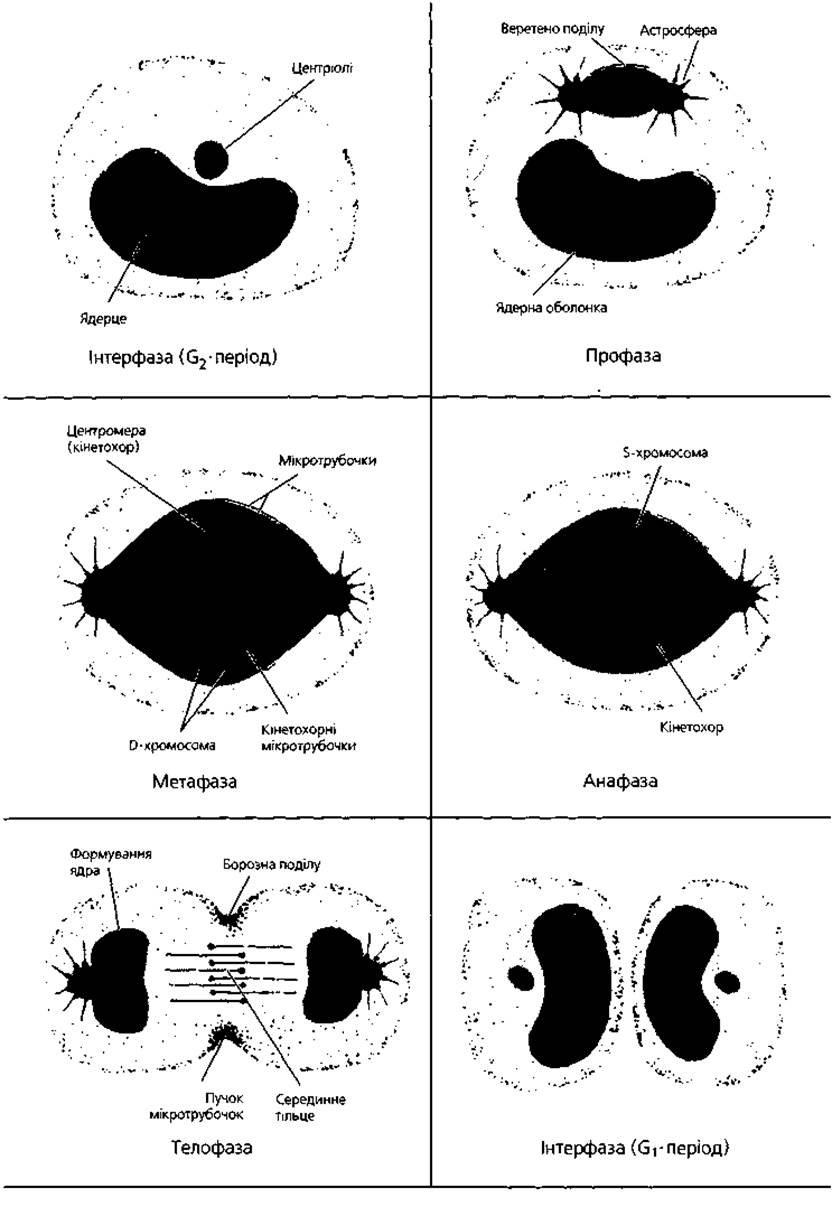
Рис. 1.22. Схематичне відтворення морфології послідовних фаз мітозу тваринних клітин

Рис. 1.23. Морфологія послідовних фаз мітозу клітин слизової оболонки матки за даними світлової мікроскопії, х1200
Анафаза. Усі сестринські хроматиди одночасно в усіх хромосомах втрачають зв'язок між собою у ділянці центромери і синхронно починають рухатися до протилежних полюсів клітини зі швидкістю 0,2-0,5 мкм/хв. Вони орієнтовані центромерами до полюсів, а плечима - до екватора. Це найкоротша стадія мітозу, яка займає лише кілька відсотків від усього часу. Анафаза - дуже важлива стадія мітозу, саме на цій стадії відбувається відокремлення двох ідентичних наборів хромосом та їхнє переміщення до протилежних полюсів клітини. Крім руху самих хромосом до полюсів додатково розходяться ще й самі полюси. Механізм руху хромосом точно не відомий. Більшість дослідників дотримується гіпотези "ковзних ниток", згідно з якою сусідні мікротрубочки веретена, взаємодіючи між собою та скоротливими білками, тягнуть хромосоми до полюсів.
Телофаза починається із зупинки двох диплоїдних наборів хромосом. Орієнтація хромосом лишається такою ж, як і в анафазі, тобто центромерами до полюса. Вони деконденсуються, збільшуються в об'ємі. У місцях їх контактів з мембранними пухирцями цитоплазми відновлюється ядерна оболонка. Здійснюється формування нових ядерець. У телофазі також відбувається поділ клітинного тіла, що має назву цитотомії, або цитокінезу. У тваринних клітин він проходить шляхом утворення перетяжки у ділянці колишнього екватора: плазмолема вгинається всередину клітини. При цьому в кортикальному шарі цитоплазми в зоні екватора циркулярно розташовуються актинові фібрили. Скорочення такого кільця завершується поділом клітинного тіла. В утворених клітинах починається новий G,-nepiofl.
Хромосоми - це щільні паличко- або ниткоподібні тільця, які добре фарбуються основними барвниками, стають помітними в ядрі клітини підчас мітотичного поділу. У людини мають діаметр 0,2—2 мкм та довжину 1,5— 10 мкм. Термін "хромосома" запропонував В. Вальдеєр. Поява хромосом - найхарактерніша ознака поділу клітини. Відомо, що хромосоми не зникають із закінченням мітозу, а існують у ядрі і під час інтерфази, але завдяки деконденсації набувають іншого вигляду і не помітні як окремі тільця. В основі як інтерфазних, так і мітотичних хромосом лежать молекули дезоксирибонуклеопротеїнів - ДНП. Останнім часом отримані докази того, що кожна хромосома побудована з однієї гігантської молекули ДНП, запакованої у відносно коротке тільце - власне мітотичну хромосому. Підраховано, що довжина індивідуальних лінійних молекул ДНК може досягати сотень мікрометрів і навіть кількох сантиметрів. Серед хромосом людини найбільшою є перша хромосома. Вона містить ДНК загальною довжиною молекули близько 7 см. Сумарна довжина молекул ДНК у всіх хромосомах однієї клітини людини становить близько 170 см, що відповідає масі 6х10-12 г. Виявлено, що у мітотичній хромосомі гігантська молекула дезоксирибонуклеопротеїну утворює бічні петлі. Типова хромосома людини може містити 2600 петель, кожна з яких утворена ділянкою хроматинової фібрили із середньою довжиною близько 400 нм (0,4 мкм). Компактизація петель призводить до утворення таких структур, як хромонемні фібрили (хромонеми) (рис. 1.18). Шляхом взаємодії усіх компонентів хромосоми відбувається кінцева компактизація хроматину у вигляді мітотичної хромосоми.
Морфологію мітотичних хромосом (рис. 1.24) найкраще вивчати у метафазі та на початку анафази, коли вони є найбільш конденсованими. Кожна мітотична хромосома складається з двох хроматид (d-хромосома). У кожній хромосомі можна помітити звужене місце - первинну перетяжку (центромеру) (рис. 1.18), яка поділяє хромосому на два плеча. Хромосоми, що мають плечі рівної довжини, називають метацентричними. Якщо одне плече коротше, хромосома має назву субметацентричної. Третій різновид хромосом має центромеру, розташовану майже на кінці. Вона відокремлює коротеньке, часто малопомітне плече - це так звані акроцентричні хромосоми. У ділянці первинної перетяжки розташований кінетохор, який є центром організації мікротрубочок, що утворюють хромосомні нитки веретена поділу. Деякі хромосоми мають також вторинні перетяжки, які локалізовані поблизу одного з кінців хромосоми і відокремлюють так званий супутник хромосоми. Вторинні перетяжки ще називають ядерцевими організаторами, оскільки саме у цих ділянках на початку інтерфази утворюється ядерце. Ділянки хромосом, розташовані поблизу первинної перетяжки, мають назву прицентромерних. Вони є зонами активної рекомбінації генів. Кінцеві ділянки хромосом називають теломерами. Вони містять послідовності нукпеотидів, що повторюються. Теломери запобігають розпаду хромосом або їх злиттю з іншими хромосомами. Після кожного поділу клітини довжина теломерних ділянок зменшується. Тому теломери є важливими регуляторами тривалості життя клітини й організму в цілому, являючи собою своєрідну «шагреневу шкіру», якої з віком стає все менше. У малодиференційованих клітинах зародка виявлено ензим теломеразу, який відбудовує теломери. Теломеразу виділено також із пухлин, що пояснює здатність їх клітин до необмеженої кількості поділів.
Кожний вид рослинних і тваринних організмів має специфіку числа, розмірів та будови хромосом. Сукупність цих ознак хромосомного набору називається каріотипом. Каріотип людини характеризує наявність 23 пар хромосом, серед яких є 22 пари аутосом і одна пара статевих хромосом. Серед останніх, що мають назву гоносом, розрізняють X- та У-хромосоми. Хромосоми людини поділяють за розмірами на сім груп - А, В, С, D, Е, F, G. Кількість хромосомних наборів у клітині позначають терміном "плоїдність" і літерою "n". Соматичні клітини мають подвійний (диплоїдний) набірхромосом (2 n), Статеві клітини - одинарний (гаплоїдний, n) набір. Якщо клітина має 3 п набір хромосом, то вона триплоїдна, якщо 4 n — тетраплоїдна тощо. Велика кількість хромосомних наборів позначається терміном "поліплоїдія".
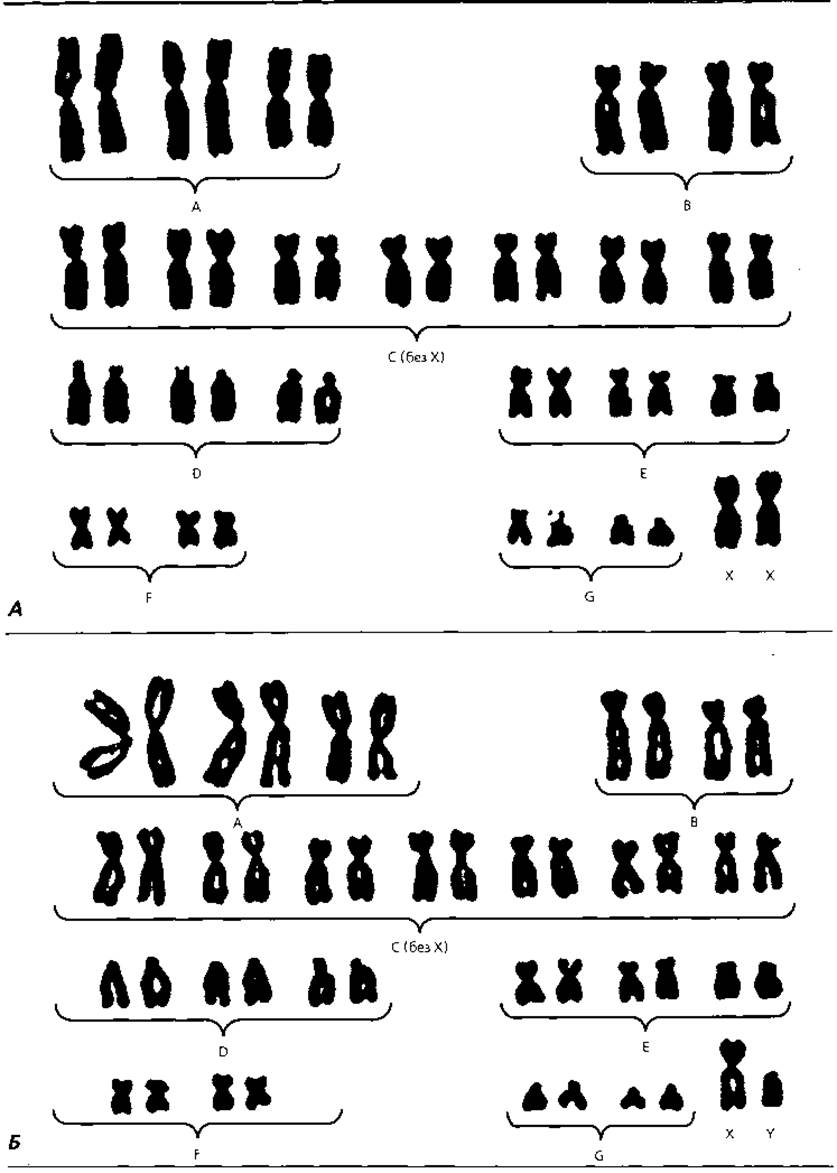
Рис. 1.24. Хромосомний набір (каріотип) жінки (А) та чоловіка (Б). Відмінність лише у статевих хромосомах: XX - у жінки та XY - у чоловіка. Хромосоми групуються у 7 груп (А, В, С, D, Е, F, G) за характерною морфологією та специфічним розміщенням смуг фарбування (на цьому рисунку вони не помітні)
Значні успіхи на шляху вивчення морфології хромосом були досягнуті внаслідок застосування спеціальних методів їхнього фарбування - так званого диференційованого фарбування, уперше запропонованого Т. Касперсоном. Виявилося, що хромосоми фарбуються неоднорідно. Важливим є те, що кожна хромосома під час такого диференційованого забарвлення має свій неповторний малюнок. Останній дає змогу чіткої ідентифікації кожної хромосоми в наборі, а також складання так званих хромосомних карт з визначенням локалізації у них певних генів. У 2001 р. було завершено проект "Геном людини" - розшифровано послідовність нуклеотидів та встановлено хромосомну локалізацію усіх генів людини.
Ендомітоз. На основі мітотичного циклу виникла низка механізмів, за допомогою яких кількість спадкового матеріалу може бути збільшена при збереженні сталості числа клітин. Ендомітоз, або ендорепродукція, - це Утворення клітин зі збільшеним вмістом ДНК, що відбувається унаслідок блокування мітозу на певних етапах. Зупинка мітозу можлива після G2-періоду, тоді клітина може пройти наступний цикл реплікації ДНК. Це зумовить зростання кількості хромосомних наборів у чотири-вісім і більше разів. Морфологічно такі ядра нічим не відрізняються від ядер з диплоїдним набором, лише збільшеним об'ємом. Зупинка мітозу можлива також у профазі або метафазі, коли порушується функція веретена поділу. Нарешті, можливе проходження клітиною усіх фаз мітозу, включаючи телофазу, без поділу клітинного тіла. Так виникають двоядерні клітини (наприклад, клітини печінки у людини). У результаті серії ендомітозів виникають гігантські поліплоїдні клітини червоного кісткового мозку - мегакаріоцити, які можуть мати число хромосомних наборів до 64 n. Необхідно зазначити, що поліплоїдія спостерігається лише у спеціалізованих диференційованих клітинах.
Мейоз (рис. 1.25) - своєрідна форма клітинної репродукції, яка характерна для процесу утворення статевих клітин. Мейоз включає два послідовних мітотичних поділи, між якими відсутня інтерфаза. У результаті мейозу утворюються клітини з гаплоїдним набором хромосом. Характерною особливістю профази мейозу є Кросинговер - обмін гомологічними ділянками хромосом, який є одним із суттєвих чинників мінливості організмів. Детальніше процес мейозу розглянуто у розділах "Чоловіча Статева система" та "Жіноча статева система".
Серія клітинних циклів завершується загибеллю клітини. Розрізняють дві основних форми загибелі клітин - некроз і апоптоз.
Некроз виникає унаслідок дії на клітину різних ушкоджувальних фізичних, хімічних або біогенних чинників, які змінюють проникність мембран і процеси клітинного метаболізму. Морфологічними проявами ранніх етапів ушкодження клітин є їхнє округлення із втратою відростків і мікроворсинок. Потім спостерігається набрякання мітохондрій, вакуолізація цистерн ендоплазматичної сітки, збільшення числа лізосом і автофагосом, що свідчить про активацію автолітичних процесів. Зміни в цитоплазмі супроводжуються змінами ядра. Спочатку виникає пікноз - зморщування ядерного матеріалу з утворенням однорідної щільної гіперхромної маси, пізніше - каріорексис - розпад ядра на окремі фрагменти і, нарешті, каріолізис - розчинення ядра. На заключному етапі відбувається лізис усієї клітини.
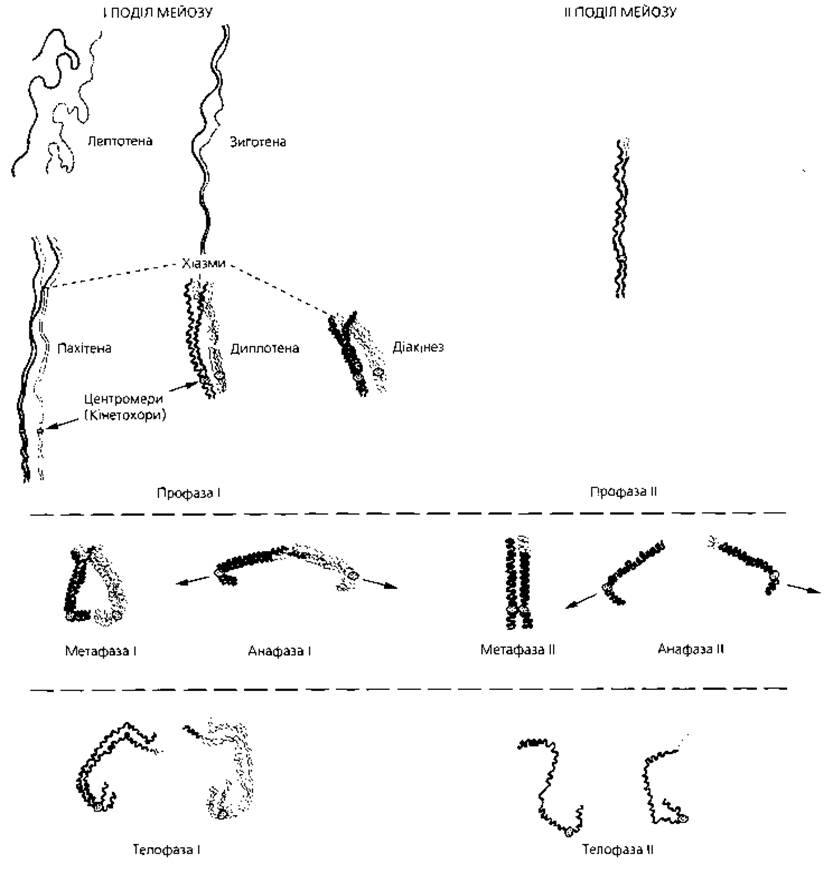
Рис. 1.25. Перетворення хромосомного матеріалу на послідовних стадіях мейозу
Апоптоз - запрограмована смерть клітини, яка виникає без первинного ушкодження клітинного метаболізму. Це активний генетично контрольований процес, який індукується особливими кілерними генами. Останні забезпечують синтез речовин, що спричиняє ушкодження клітини. В останні роки виявлені також гени-рятівники, експресія яких інгібує розгортання процесів апоптозу. Апоптоз є поширеним фізіологічним явищем упродовж ембріогенезу. Клітини ембріональних закладок, які представлені у надмірних кількостях, гинуть саме шляхом апоптозу. Спостерігається запрограмована смерть клітин і в дорослому організмі. Так, шляхом апоптозу гинуть клітини жовтого тіла яєчника. Морфологічними проявами апоптозу є ущільнення ядра, конденсація хроматину у вигляді півмісяця. У такому разі інтерфазні хромосоми розщеплюються ендонуклеазами в міжнукпеосомних ділянках. Ядро розпадається на "мікроядра", оточені ядерною оболонкою. Відбувається конденсація цитоплазми та її фрагментація. Від клітини відокремлюються так звані апоптозні тільця - великі фрагменти, що містять "мікроядра". Апоптозні тільця фагоцитуються макрофагами або некротизуються та лізуються.
Терміни для запам'ятовування
1. Ядро. 2. Індекс Гертвіга. 3. Клітина ядерного типу. 4. Клітина цитоплазматичного типу. 5. Інтерфазне (метаболічне) ядро. 6. Паранекроз. 7. Каріопікноз. 8. Каріорексис. 9. Каріолізис. 10. Ядерна оболонка (нуклеолема). 11. Ядерна ламіна. 12. Перинуклеарний простір. 13. Ядерна пора. 14. Комплекс пори. 15. Хроматин. 16. Гетерохроматин. 17. Структурний гетерохроматин. 18. Факультативний гетерохроматин. 19. Статевий хроматин (тільце Барра). 20. Еухроматин. 21. Нукпеосома. 22. Ядерце. 23. Зона ядерцевого організатора. 24. Нуклеолонема. 25. Каріоплазма. 26. Ядерний матрикс. 27. Клітинний цикл. 28. Інтерфаза. 29. Пресинтетичний період. 30. Синтетичний період. 31. Постсинтетичний період. 32. Мітоз. 33. Профаза. 34. Метафаза. 35. Анафаза. 36. Телофаза. 37. Веретено поділу. 38. Хромосома. 39. Центромера (первинна перетяжка). 40. Кінетохор. 41. Плече хромосоми. 42. Метацентрична хромосома. 43. Субметацентрична хромосома. 44. Акроцентрична хромосома. 45. Вторинна перетяжка хромосоми. 46. Супутник хромосоми. 47. Теломери. 48. Теломераза. 49. Диплоїдний набір хромосом. 50. Гаплоїдний набір хромосом. 51. Поліплоїдія. 52. Ендомітоз. 53. Мейоз. 54. Некроз. 55. Апоптоз. 56. Апоптозні тільця.
Последнее обновление: 05/02/2024
Редакционная и учебная адаптация: Данный материал сведен на основе первоисточника/оригинального текста. Команда проекта осуществила редакционную обзорную обработку, исправление технических неточностей, структурирование разделов и адаптацию содержания к учебному формату.
Что было обработано:
- устранение форматных дефектов (OCR-ошибки, разрывы структуры, дефектные символы);
- редакционное упорядочивание содержания;
- унификация терминов в соответствии с академическими источниками;
- проверка соответствия фактических утверждений текста первоисточнику.
Все упоминания об авторе, годе издания и происхождении первичного текста сохранены в соответствии с источником.