Гістологія людини - О.Д. Луцик 2003
Ембріологія
Статеві клітини. Запліднення. Дроблення. Імплантація
Ембріологія - загальнобіологічна наука, що вивчає закони утворення зародка і процес його розвитку. У сучасних умовах це наука, що бурхливо розвивається. Знання законів ембріології дає змогу успішно боротися з такими недугами, як чоловіча або жіноча неплідність, що стають дедалі поширенішими у розвинутих країнах світу, вибирати стать майбутньої дитини, створює можливість для раннього (задовго до народження дитини) прогнозування можливих вад розвитку тощо. Ембріологія надзвичайно тісно пов'язана з практичною медициною, зокрема з акушерством та гінекологією, медичною генетикою, ендокринологією, а також молекулярною біологією і біохімією.
У процесі індивідуального розвитку організму - онтогенезі - розрізняють два основних етапи: пренатальний та постнатальний онтогенез. Онтогенезові передує прогенез - процес утворення чоловічих та жіночих статевих клітин-гамет, які необхідні для виникнення нового організму. Тому прогенез називають ще гаметогенезом. У разі злиття чоловічої та жіночої статевих клітин утворюється одноклітинний зародок - зигота. З цього моменту розпочинається так званий пренатальний онтогенез, або розвиток організму до народження. Пренатальний онтогенез у людини в нормі продовжується близько 280 діб (40 тижнів). У пренатальному онтогенезі розрізняють початковий період, який охоплює 1-7 добу розвитку. У цей період у результаті послідовних мітотичних поділів із зиготи утворюється багатоклітинний Організм - бластоциста, яка в кінці початкового періоду вростає у стінку матки (здійснюється процес імплантації).
З другого до восьмого тижня продовжується зародковий період розвитку, під час якого у складі зародка з'являються зачатки тканин, органів і систем. Плодовий період пренатального онтогенезу продовжується з третього до дев'ятого місяця і завершується народженням дитини. У цей період здійснюються процеси подальшого структурного і функціонального становлення тканин та органів плода, а також диференціації клітин, що їх утворюють. Прогенез, початковий і зародковий (ембріональний) періоди онтогенезу складають предмет вивчення власне ембріології. У ширшому розумінні ембріологія охоплює також плодовий і ранній постнатальний (перинатальний) періоди розвитку організму.
Постнатальний онтогенез розпочинається з моменту народження дитини і закінчується зі смертю організму. Завершуючи загальну характеристику онтогенезу, необхідно зазначити, що в кінці XIX ст. був сформульований основний біогенетичний закон (закон Геккеля-Мюллера), згідно з яким пренатальний онтогенез є коротким повторенням філогенезу, тобто індивідуальний розвиток зародка у скороченому вигляді повторює історичний розвиток свого виду.
Сперматозоїди (рис. 2.1). Процес утворення чоловічих статевих клітин має назву сперматогенезу. Здійснюється він у чоловічій статевій залозі - яєчку, в складі його звивистих сім'яних канальців. Детально процес сперматогенезу розглянуто в розділі "Чоловіча Статева система".
Зрілий сперматозоїд людини має довжину близько 60 мкм. Передня овальна його частина називається головкою (її розміри: довжина - 4,5 мкм, ширина - 3 мкм, товщина - 1 мкм), задня - витягнутої ниткоподібної форми - хвостом. Між ними розташована зв'язувальна частина (шийка). Хвіст включає проміжну, основну та кінцеву (термінальну) частини. У головці сперматозоїда розміщене Ядро з гаплоїдним набором хромосом. У хромосомному наборі сперматозоїда людини налічується двадцять дві аутосоми і одна гоносома (статева хромосома). Вона буває Х або У. Відповідно до наявності X- або Y-хромосом сперматозоїди поділяють на два різновиди: ті, що несуть Y-хромосому (андроспермії), дають початок організмові чоловічої статі; сперматозоїди - носії Х-Хромосоми (гінекоспермії) у разі злиття з яйцеклітиною започатковують жіночий організм.
У передній частині головки ядро сперматозоїда у вигляді чохлика вкривають елементи видозміненого комплексу Гольджі, які мають назву акросоми. Це пухирці, заповнені гідролітичними ферментами - трипсином, гіалуронідазою, необхідними для розчинення оболонок яйцеклітини та успішної реалізації процесу Запліднення. Зв'язувальна частина (шийка) сперматозоїда - вузька ділянка цитоплазми позаду ядра містить проксимальну центріоль (у ямці, утвореній ядром) і дистальну центріоль, від якої починається аксонемний комплекс хвоста. Останній побудований із 9 пар мікротрубочок на периферії і однієї пари у центрі. Окрім цього у шийці і хвості розташовані особливі елементи цитоскелету. Навколо центріолей у шийці містяться 9 сегментованих колон, які дистально пов'язані з 9-ма щільними волокнами, розташованими навколо мікротрубочок аксонеми у проміжному відділі хвоста. Щільні волокна у цьому відділі оточені локалізованими по спіралі мітохондріями, які формують так звану мітохондріальну піхву. Довжина проміжного відділу - 7 мкм. Мітохондрії забезпечують енергією рухову активність сперматозоїда.
У головному відділі хвоста (довжина його - приблизно 40 мкм) аксонема оточена волокнистою піхвою, утвореною поздовжніми стовпами, сполученими ребрами. Кінцева частина хвоста сперматозоїда довжиною приблизно 5 мкм, містить лише аксонемний комплекс.
Class="center">
Рис. 2.1. Сперматозоїд: А - Морфологія зрілого сперматозоїда людини; Б - сканована електронна мікрофотографія сперматозоїда у порожнині матки, х 2000
Сперматозоїди мають низку функціональних особливостей, завдяки яким вони здатні запліднювати яйцеклітину. Так, завдяки наявності рухомого хвоста Чоловічі статеві клітини здатні переміщатися у певному напрямку зі швидкістю до 50 мкм/с. Напрямок переміщення визначається властивістю сперматозоїдів рухатися до яйцеклітини, яка виділяє специфічні атрактанти сперматозоїдів - гіногамони (ці речовини поширені у тваринному світі, у людини поки що не знайдені). Здатність сперматозоїдів реагувати на хімічні сигнали-подразники має назву хемотаксису. Сперматозоїди можуть рухатися проти потоку рідини - продуктів секреції епітеліоцитів маткових труб і маткових залоз. Ця властивість називається реотаксисом. Оптимальним для життєдіяльності сперматозоїдів є слабколужне середовище, тоді як за умови кислого значення pH чоловічі статеві клітини втрачають рухомість, склеюються і швидко гинуть.
У людини в нормі під час еякуляції (сім'явиверження) виділяється 3-5 мл сперми, що містить близько 350 мільйонів сперматозоїдів. Для реалізації процесу запліднення загальна кількість сперматозоїдів у еякуляті повинна бути не меншою ніж 150 мільйонів, а їх концентрація в 1 мл сперми - не меншою ніж 60 мільйонів. За оптимальних умов (температури, pH середовища) сперматозоїди через 0,5-1 год після статевого акту можуть досягати порожнини матки, а через 1,5-2 год - ампульної частини маткової труби, де відбувається їх контакт з яйцеклітиною. Здатність до запліднення яйцеклітини сперматозоїди зберігають 36-88 год після еякуляції.
Яйцеклітина (рис. 2.2). Жіночі статеві клітини утворюються у жіночій статевій залозі - яєчнику, а процес їх утворення має назву овогенезу. Овогенез включає три періоди - розмноження, росту та дозрівання, останній з названих періодів завершується після овуляції (вивільнення овоцита з яєчника) у матковій трубі. Детально характеристика процесу овогенезу наведена в розділі "Жіноча статева система".
Постовуляторна яйцеклітина людини має круглу форму, діаметр близько 130 мкм, вона оточена прозорою зоною, а також клітинами фолікулярного епітелію (зернистою зоною). Після взаємодії зі сперматозоїдами яйцеклітина завершує другий поділ мейозу, перетворюючись з овоцита II у зрілу яйцеклітину.
У ядрі яйцеклітини міститься гаплоїдний набір хромосом, що включає 22 аутосоми і одну статеву Х-хромосому. Цитоплазма яйцеклітини багата на включення поживного матеріалу - жовтка. Останній являє собою ліпофосфопротеїнові комплекси високої енергетичної цінності, нагромаджені в мішечках комплексу Гольджі. Відповідно до кількості жовтка яйцеклітину людини відносять до вторинно оліголецитальних (маложовткових), ураховуючи цитотопографію жовтка - до ізолецитальних (з рівномірним розподілом жовтка в цитоплазмі). Вторинна поява у процесі еволюції оліголецитальних яйцеклітин (людини і плацентарних ссавців) зумовлена тим, що у зв'язку з переходом зародка на живлення за рахунок організму матері відпадає необхідність у нагромадженні значних запасів жовтка. У цитоплазмі яйцеклітини міститься добре розвинена гранулярна ендоплазматична сітка, значна кількість рибосом, різних видів РНК, тубулінів. У периферійних зонах цитоплазми (під плазмолемою) овоцита зосереджена значна кількість так званих кортикальних гранул. Останні являють собою комплекси протеогліканів і глікопротеїнів, нагромаджені в складі мішечків комплексу Гольджі. Кортикальні гранули забезпечують утворення непроникної для сперматозоїдів оболонки запліднення, яка забезпечує овоцит від поліспермії (проникнення у цитоплазму більше ніж одного сперматозоїда).
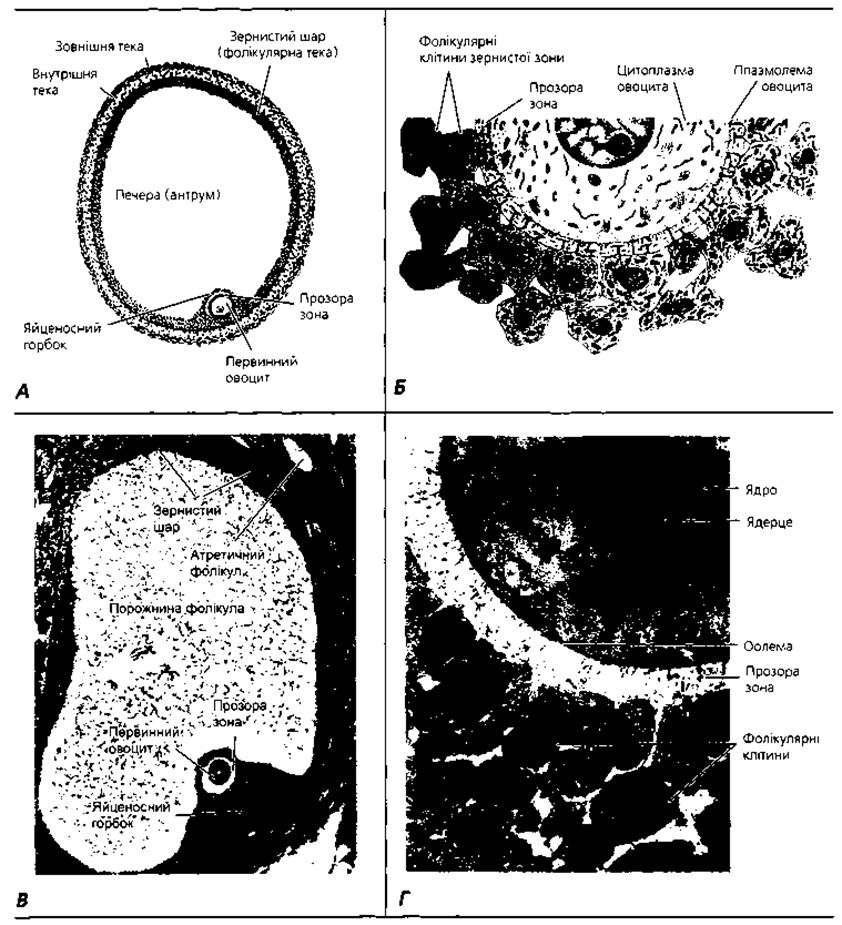
Рис. 2.2. Преовуляторний овоцит у складі третинного (зрілого) фолікула яєчника. Схематизовані рисунки за даними світлової (А) та електронної (Б) мікроскопії; В - мікрофотографія з гістологічного препарату преовулярного фолікула діаметром 10 мм, х 60; Г - електронна мікрофотографія фрагмента первинного овоцита з прилеглими фолікулярними клітинами, х 1800
Протягом усього репродуктивного періоду життя жінки (приблизно з 15 до 50 років) дозріває і може бути запліднено близько 400-500 яйцеклітин, реальне ж число запліднених яйцеклітин звичайно значно менше. Резерв поживних речовин яйцеклітина використовує протягом 12-24 год з моменту овуляції, після чого незапліднена яйцеклітина гине.
Запліднення (рис. 2.3) - процес злиття чоловічої та жіночої статевих клітин, у результаті якого виникає одноклітинний зародок - зигота. У людини запліднення здійснюється в ампульній частині маткової труби. Яйцеклітина потрапляє туди пасивно - завдяки скороченням виростів труби (фімбрій), коливанням війок епітеліоцитів, а також у результаті перистальтичних скорочень м'язової оболонки маткової труби.
Сперматозоїди досягають ампульної частини маткових труб завдяки своїм фізіологічним особливостям - рухомості, хемотаксису та реотаксису. Слід пам'ятати, що підготовка сперматозоїдів до запліднення яйцеклітини починається ще під час проходження сім'явиносних шляхів. Тоді відбувається модифікація поверхневих глікополімерів плазмолеми (глікокаліксу) сперматозоїдів, що оберігає чоловічі статеві клітини від руйнування у статевих шляхах жінки. Після еякуляції сперматозоїди можуть протягом кількох діб зберігатись у неактивному стані в дистальній частині перешийку маткової труби. Після овуляції такі "депоновані" сперматозоїди активуються і починають переміщатися назустріч яйцеклітині, до ампули яйцевода.
Сперматозоїди, які щойно потрапили у жіночі статеві шляхи, не здатні до запліднення. Для набуття цієї здатності вони повинні пройти капацитаціюта акросомну реакцію. Основна суть капацитації, яка відбувається у матковій трубі і триває в людини приблизно 7 годин, полягає у взаємодії між сперматозоїдом і поверхнею слизової оболонки маткової труби. При цьому глікопротеїнове покриття і білки сім'яної рідини видаляються з плазматичної мембрани акросомної ділянки сперматозоїда. Тільки капацитовані сперматозоїди можуть здійснити акросомну реакцію і проникнути крізь променистий вінець яйцеклітини.
Акросомна реакція відбувається після зв'язування сперматозоїда з прозорою зоною і викликається білками останньої. Суть реакції полягає у звільненні ензимів, необхідних для пенетрації прозорої зони, - акрозину та трипсиноподібних речовин. З близько 350 мільйонів сперматозоїдів, що потрапляють у жіночі статеві шляхи під час еякуляції, лише 300-500 досягають місця запліднення і тільки один з них запліднює яйцеклітину, а інші лише допомагають йому долати бар'єри, які оточують овоцит. У процесі запліднення сперматозоїд повинен послідовно подолати три бар'єри: зернисту зону, прозору зону і плазмолему яйцеклітини. Капацитовані сперматозоїди легко проникають крізь клітини зернистої зони.

Рис. 2.3. Запліднення: А - первинний овоцит викидається під час овуляції зі зрілого фолікула яєчника і внаслідок скорочення фімбрій і руху війок маткової труби потрапляє у її ампульну частину; Б - послідовні фази пенетрації сперматозоїда через оболонки яйцеклітини: фаза 1 - адгезія; фаза 2 - проникнення через прозору зону; фаза 3 - проникнення ядра і проксимальної центріолі сперматозоїда через плазмолему овоцита
Прозора зона - важливий бар'єр на шляху сперматозоїда. Вона побудована головним чином з глікопротеїнів - ZP1, ZP2, ZP3. Прозора зона забезпечує зв'язування сперматозоїда, а також індукує акросомну реакцію. Зв'язування забезпечується білком ZP3, до якого сперматозоїд має рецептори. Водночас цей процес запускає акросомну реакцію, яку можна розглядати як різновид екзоцитозу. При цьому зовнішня мембрана акросоми і клітинна мембрана сперматозоїда зливаються, а Ферменти акросоми, що вивільняються, розщеплюють молекули прозорої зони і в останній формується вузький канал, крізь який проникає сперматозоїд. Первинна адгезія сперматозоїда з овоцитом частково опосередковується взаємодією інтегринів поверхні овоцита та їхніх лігандів на поверхні сперматозоїда. Після адгезії плазматичні мембрани сперматозоїда і яйцеклітини зливаються і в цитоплазму овоцита входять головка і хвіст сперматозоїда, тоді як його плазмолема залишається фіксованою до поверхні овоцита.
Після пенетрації сперматозоїда в цитоплазму овоцита розпочинається кортикальна реакція. Остання полягає у викиданні матеріалу кортикальних гранул за межі овоцита. Високомолекулярні біополімери кортикальних гранул під час взаємодії з глікокаліксом плазмолеми овоцита утворюють непроникну для сперматозоїдів оболонку запліднення. Прозора зона міняє свою структуру і склад, щоб запобігти зв'язуванню і пенетрації інших сперматозоїдів. Цим забезпечується моноспермність запліднення.
У цитоплазмі заплідненого овоцита здійснюється низка послідовних змін. Зокрема, завершується другий поділ дозрівання, в результаті якого з овоцита II утворюється зріла яйцеклітина і одне полярне тільце. Ядро сперматозоїда після проникнення в овоцит рухається вперед і перетворюється у чоловічий пронуклеус. З ядра яйцеклітини формується жіночий пронуклеус. Кожний з пронуклеусів реплікує свою ДНК, після чого вони втрачають ядерні оболонки й утворюють загальну метафазну пластинку зиготи з веретеном поділу. Таким чином забезпечується диплоїдність клітин майбутнього зародка. Взаємодією пронуклеусів завершується власне запліднення. У складі шийки сперматозоїда в яйцеклітину потрапляє центріоль, необхідна для поділу зиготи. Окрім батьківських хромосом сперматозоїд вносить в новий організм свій мітохондріальний Геном разом з мітохондріями, а також сигнальний білок дроблення.
У зиготі відбувається активний перерозподіл цитоплазматичного матеріалу, який має назву ооплазматичної сегрегації. При цьому формуються так звані презумптивні зони - ділянки цитоплазми зиготи, з яких ймовірно розвиватимуться ті або інші частини організму зародка.
Дроблення (рис. 2.4) - наступний після запліднення період життя зародка, котрий включає низку послідовних мітотичних поділів, у результаті яких зигота перетворюється у багатоклітинний організм. Дроблення охоплює проміжок з першої до кінця шостої доби. Характерною його особливістю є дуже короткий період інтерфази між двома послідовними мітозами, внаслідок чого розміри новоутворених клітин зародка прогресивно зменшуються. Клітини, з яких побудований зародок у період дроблення, мають назву бластомерів. Унаслідок послідовного зменшення величини бластомерів розміри зародка шостої доби розвитку не перевищують розмірів зиготи, так що бластоцита вміщається у просторі, обмеженому оболонкою запліднення. Дроблення завершується, коли розмір бластомерів наближається до розміру соматичних клітин організму.

Рис. 2.4. Дроблення: А - схема послідовних етапів запліднення і дроблення; Б - фазово-контрастне зображення зиготи та двоклітинного зародка людини; В - сканована електронна мікрофотографія восьмиклітинного зародка
Для зиготи людини характерне повне, субеквальне, асинхронне дроблення. Ці терміни означають, що борозна дроблення проходить через усю зиготу або зародок; утворювані бластомери майже однакові за розмірами (субеквальні); різні бластомери вступають у мітотичний поділ неодночасно (асинхронно).
На восьмиклітинній стадії бластомери формують нещільний конгломерат клітин. Однак уже після третього поділу дроблення, приблизно через З доби після запліднення, вони максимально збільшують площу міжклітинних контактів, утворюючи компактну клітинну масу, яка утримується разом завдяки щільним контактам. Цей процес, що має назву компактизації, призводить до відокремлення зовнішніх клітин від внутрішніх, які сполучаються між собою щілинними контактами (нексусами). На цій стадії зародок має назву морули (тутової ягоди). Центральні клітини морули зв'язані нексусами, через які здійснюється інформаційна міжклітинна взаємодія, вони формують внутрішню клітинну масу. Периферійні клітини, пов'язані щільними контактами, утворюють бар'єр, який обмежує внутрішнє середовище морули. Вони формують зовнішню клітинну масу (трофобласт).
На 4-ту добу після запліднення зародок потрапляє у матку. У цей час в ньому виникає порожнина - бластоцель, заповнена рідиною, яка транспортується всередину зародка з його мікрооточення клітинами трофобласта. Ембріон тепер має назву бластоцисти. Він має вигляд пухирця, стінку якого утворюють видовжені клітини трофобласта. Всередині міститься бластоцель, на одному з полюсів на внутрішній поверхні трофобласта локалізована внутрішня клітинна маса, або ембріобласт. З ембріобласта розвивається власне зародок і деякі позазародкові органи (часткове або повне розділення внутрішньої клітинної маси призводить до утворення близнюків). З трофобласта утворюється хоріон - зародкова частина плаценти. До кінця 4-ї доби розвитку продуковані клітинами трофобласта ензими розчиняють оболонку запліднення (видозмінену прозору зону), створюючи цим передумови для наступної імплантації.
Імплантація (рис. 2.5) - процес вростання зародка у слизову оболонку матки, який здійснюється на 7-8-му добу розвитку. До цього часу зародок під впливом перистальтичних скорочень, руху війок і переміщення секрету епітеліоцитів маткової труби проходить від ампульної частини останньої до порожнини матки. Це, так званий, трубний період життя зародка (перша-четверта доба). З п'ятої до сьомої доби у порожнині матки знаходиться зародок у вигляді вільної бластоцисти (не зв'язаної з певною ділянкою ендометрію). Живлення зародка у названі періоди здійснюється частково за рахунок поживних речовин овоцита, частково - за рахунок секрету маткових труб і залоз ендометрію. Сьому-восьму добу, коли бластоциста вступає у контакт зі слизовою оболонкою матки, вважають критичним періодом розвитку, оскільки існує загроза, що внаслідок тих чи інших причин вростання в ендометрій нездійсниться і зародок загине. Розрізняють дві фази імплантації - адгезію та інвазію.

Рис. 2.5. Імплантація: А - схема будови зародка (бластоцисти) людини на 4-5-ту добу розвитку; Б - мікрофото препарату 107-клітинного зародка людини; В - вростання трофобласта ембріонального полюса бластоцити у слизову оболонку матки на 5-б-ту добу після запліднення; Г - схема будови зародка людини на момент завершення імплантації (12-та доба розвитку)
Адгезія (прилипання) полягає у прикріпленні бластоцисти до поверхні ендометрію. Звичайно бластоциста прикріплюється між вивідними протоками двох сусідніх маткових залоз, що свідчить про важливу роль їх секреторних продуктів у реалізації адгезії. У свою чергу, секреція маткових залоз залежить від продукції прогестерону жовтим тілом яєчника. Без створення в організмі певного гормонального фону, без відповідної гормонозалежної перебудови слизової оболонки матки імплантація не може бути успішною. Існують докази того, що в основі першої фази імплантації лежить механізм взаємодії високомолекулярних глікополімерів секрету маткових залоз і глікокалікса клітин ендометрію зі специфічними білками-лектинами поверхні бластоцисти.
Інвазія (вростання) бластоцисти у слизову оболонку матки здійснюється за участю ферментних систем трофобласта. Під їх впливом спершу руйнуються епітеліоцити, потім сполучна тканина і, нарешті, стінка судин ендометрію. При цьому бластоциста втоплюється в імплантаційну ямку, обростає сполучною тканиною. Дефект епітелію заростає у результаті проліферації епітеліоцитів ендометрію. До того часу, поки трофобласт не розчинив стінку судин ендометрію і не вступив у контакт з материнською Кров'ю, триває гістіотрофний період ембріогенезу. Він охоплює перші чотири тижні розвитку. Живлення зародка у цей період здійснюється за рахунок засвоєння поживних речовин із секрету маткових залоз і продуктів руйнування трофобластом тканин ендометрію. В моменту контакту зародка з материнською кров'ю і до народження дитини (з другого по дев'ятий місяць) триває гематотрофний (гемотрофний) період. У цей період постачання зародка і плода поживними речовинами, газообмін здійснюються за рахунок крові материнського організму.
У ряді випадків (звуження маткової труби, неправильний напрям переміщення бластоцисти) ембріон може не досягти порожнини матки. Найчастіше результатом цього є так звана Трубна Вагітність, за якої трофобласт зародка вростає у слизову оболонку маткових труб. Така аномалія імплантації може бути причиною розриву маткової труби внаслідок збільшення розмірів зародка, спричинитися до кровотечі і смерті жінки. Описані також випадки вростання зародка в Тканини яєчника, очеревину і навіть паренхіму печінки. У зв'язку з розробкою сучасних репродуктивних технологій з'явилося нове медичне і юридичне поняття — так зване сурогатне материнство: ви жінки з видаленою маткою або протипоказання щодо виношування плода оперативним шляхом отримують овоцити: використовуючи сперму чоловіка або донора, проводять екстракорпоральне запліднення; зародок на стадії 18-32 бластомерів підсаджують у матку іншої жінки, яка виношуватиме плід до моменту пологів. Під час проведення екстракорпорального запліднення можливим є вибір статі майбутньої дитини: із отриманих кількох бластоцист беруть по одному бластомеру; аналізуючи хромосомні набори них клітин, визначають наявність у них X- або Y-статевої хромосоми; бластоцисту з бажаним хромосомним набором підсаджують у матку. Успішно апробована підсадка в матку ембріонів, що були на деякий час заморожені за температури рідкого азоту. Доведена також можливість кріоконсервації овоцитів і сперми.
Протягом останніх років поширення набула пересадка гамет у маткову трубу. Для цього яйцеклітини, отримані з яєчників жінки, разом із сперматозоїдами батька помішають у маткову трубу, де відбувається запліднення. Розроблені Методи так званого збагачення сперми, коли із сім’яної рідини видаляють дефектні або неповноцінні сперматозоїди. Практикується відмивання сперматозоїдів від антитіл, наявних у спермі, що можуть бути причиною неплідності. Розроблена Методика вибору статі майбутньої дитини: за допомогою диференційного центрифугування або електрофорезу отримують фракції сперматозоїдів — носіїв X- або Y-хромосоми (андросперміїв або гінекос-перміїв); у разі внесення у статеві шляхи жінки таких очищених фракцій сперматозоїдів стать майбутньої дитини може бути визначена ще до початку розвитку ембріона. Розроблено мікрохірургічні операції на яйцеклітині, які полегшують її запліднення. Зокрема, використовується метод інтрацитоплазматичної ін'єкції сперми: з метою штучного запліднення сперматозоїд у лабораторних умовах уводиться безпосередньо у яйцеклітину. Зародок на ранніх етапах розвитку підсаджують у матку, де він розвивається. Наведені окремі приклади показують, що вже нині медична ембріологія дає змогу усувати багато форм патології репродуктивної функції, які ще донедавна вважалися невиліковними.
Розвиток медичної ембріології дає змогу розробляти нові методи Лікування різноманітних захворювань. Так. протягом останніх років розроблено клонування ембріонів з метою так званої клітинної терапії 3 яйцеклітини видаляється ядро, а замість нього вглиб овоплазми вводиться ядро клітини яйценосного горбка, фібробласта або іншої соматичної клітини. Ін’єкована диплоїдним набором хромосом яйцеклітина інкубується у розчині біоактивних речовин, які забезпечують початок дроблення. На4-5-й день клонування утворюється бластоциста, що складається приблизно зі 100 бластомерів. Із бластоцисти видаляють внутрішню клітинну масу яку продовжують інкубувати з метою отримання популяції стовбурових клітин. Останні диференціюються у різноманітні зрілі форми стовбурових клітин, що можуть уводитися пацієнту, від якого був отриманий ін'єкований в овоплазму генетичний матеріал. Наприклад, вирощені подібним чином інсулоцити підшлункової залози можуть використовуватися для лікування діабету, Нервові клітини — для відновлення ушкодженою спинного мозку або лікування паркінсонізму.
Терміни для запам'ятовування
1. Ембріологія. 2. Онтогенез. 3. Прогенез. 4. Біогенетичний закон. 5. Сперматозоїд. 6. Головка сперматозоїда. 7. Хвіст сперматозоїда. 8. Акросома. 9. Хемотаксис. 10. Реотаксис. 11. Еякуляція. 12. Яйцеклітина. 13. Жовток. 14. Вторинно оліголецитальна яйцеклітина. 15. Кортикальні гранули. 16. Запліднення. 17. Зигота. 18. Капацитація. 19. Пенетрація сперматозоїда в яйцеклітину. 20. Кортикальна реакція. 21. Оболонка запліднення. 22. Моноспермність запліднення. 23. Пронуклеуси. 24. Ооплазматична сегрегація. 25. Презумптивні зони зиготи. 26. Дроблення. 27. Морула. 28. Бластомери. 29. Бластоцель. 30. Повне субеквальне асинхронне дроблення. 31. Компактизація. 32. Ембріобласт. 33. Трофобласт. 34. Бластоциста. 35. Імплантація. 36. Фаза адгезії. 37. Фаза інвазії. 38. Гістіотрофний період живлення. 39. Гематотрофний період живлення. 40. Екстракорпоральне запліднення.
Последнее обновление: 05/02/2024
Редакционная и учебная адаптация: Данный материал сведен на основе первоисточника/оригинального текста. Команда проекта осуществила редакционную обзорную обработку, исправление технических неточностей, структурирование разделов и адаптацию содержания к учебному формату.
Что было обработано:
- устранение форматных дефектов (OCR-ошибки, разрывы структуры, дефектные символы);
- редакционное упорядочивание содержания;
- унификация терминов в соответствии с академическими источниками;
- проверка соответствия фактических утверждений текста первоисточнику.
Все упоминания об авторе, годе издания и происхождении первичного текста сохранены в соответствии с источником.