Медична генетика - В. М. Запорожан 2005
Основи онкогенетики
Регуляція мітотичного циклу
РОЛЬ ЦИКЛІН-CDKS У РЕГУЛЯЦІЇ МІТОТИЧНОГО ЦИКЛУ
Головна особливість клітин пухлини — неконтрольований Поділ клітин (проліферація), що пов’язано з порушенням регуляції мітотичного циклу.
Мітотичний цикл включає такі стадії:
1. Інтерфаза: пресинтетичний період інтерфази (G1-період), синтетичний (S-період), постсинтетичний G2-період).
2. Мітоз (М).
Клітини, які вийшли з мітотичного циклу на диференціювання (це відбувається, як правило, в G1-періоді), перебувають у так званому G0-періоді.
Ключову роль у почерговій зміні фаз мітотичного циклу виконують два сімейства білків:
— специфічні Ферменти протеїнкінази — так звані циклінзалежні кінази (Cdk — cyclin dependent kinase). Протеїнкінази — це ферменти, що фосфорилують певні білки, змінюючи їх функції;
— білки-цикліни (A, B, D, E), які зв’язуються з Cdk і не тільки активують їх, а й надають їм субстратної специфічності відносно тих чи інших білків.
Активними є комплекси циклін-Cdk, де циклін служить активатором, а Cdk — каталітичною субодиницею. Кожна фаза мітотичного циклу характеризується активністю певних циклін-Cdks. Запускають мітотичний цикл комплекси циклін D-Cdk4 і (або) циклін D-Cdk6. Вони функціонують на початковій стадії G1-періоду. Ці ж комплекси приводять до повернення сплячої G0-клітини в мітотичний цикл. Друга половина G1-періоду проходить під керуванням комплексу циклін Е-Cdk2. У синтетичному періоді діють циклін А-Cdk2 і циклін В-Cdk2. У постсинтетичному періоді діє комплекс циклін В-Cdk1 Він вводить клітину в мітоз і «керує» цим процесом, тому його називають мітоз-стимулювальним фактором — MPF (mitosis-promoting factor).
Майже всі сигнальні шляхи, регулюючі проліферацію клітин, націлені на комплекси G1-періоду — в основному циклін D-Cdk4,6 і меншою мірою — циклін Е-Cdk2.
Принципи передачі мітогенних сигналів
Перенесення мітогенного сигналу від периферії клітини до її ядра (генетичного апарату) здійснюється у вигляді каскаду реакцій фосфорилування за допомогою ферментів протеїнкіназ. Існують три типи протеїнкіназ (тирозинові, серинові та треонінові) залежно від їх здатності фосфорилувати відповідні амінокислоти. Фосфатні групи відіграють роль молекулярних перемикачів: змінюючи конфігурацію певних білкових структур (доменів), вони можуть «вмикати» і «вимикати» їх активність (маються на увазі ферментативна активність, ДНК-зв’язувальна здатність і здатність утворювати білок-білкові комплекси). У спрощеному вигляді сигнал про проліферацію клітини передається від мембранних структур за допомогою фосфатної групи від однієї протеїнкінази до іншої, подібно до естафетної палички.
Сигналом до проліферації клітини може бути з’єднання фактора росту з рецептором мембрани, з’єднання особливих мембранних білків інтегринів з позаклітинним матриксом (базальною мембраною, колагеновими волокнами) та інші сигнали.
Фактори росту — це білки, що секретуються одними клітинами і впливають на інші (стимулюють або пригнічують їхній поділ). Прикладами можуть бути епідермальний фактор росту (стимулює проліферацію епітеліальних клітин), фактор росту фібробластів, фактор росту нейронів, тромбоцитарний фактор росту, інсуліноподібний фактор росту та ін. Всі фактори росту, за винятком інсуліноподібного, сприяють переходу клітин з G0-фази в G1-фазу, а останній — з G1-фази в S-фазу.
Рецептори мембрани до факторів росту мають тирозинкіназну активність або активують цитоплазматичну тирозинкіназу. Наприклад, при зв’язуванні епідермального фактора росту з рецептором відбувається його автофосфорилування. З фосфотирозином рецептора зв’язуються специфічні сигнальні білки цитоплазми, що також є протеїнкіназами (синоніми: адаптерні білки, фактори трансдукції). У цитоплазмі виникає цілий каскад реакцій фосфоритування. Зрештою активується каскад цитоплазматичних білків MAP-кіназ (від англ. Mitogen activated protein — мітогенактивовані білки). Таким чином, адаптерні білки передають сигнал до мітозу від рецепторів до МАР-кіназ. Останні переміщаються в Ядро клітини і фосфорилують групу факторів транскрипції. Продукти цих генів, у свою чергу, активують гени цикліну D, Cdk4 і 6, а також активують ген MYC. Білок Myc інактивує інгібітори Cdks і активує Cdk2 і 4. Він також активує теломеразу (фермент, що каталізує редуплікацію теломерних кінців хромосом). Клітина починає ділитися. Схему сигнальних шляхів від факторів росту наведено на рис. 8.2.
Багато клітин здатні ділитися, якщо вони прикріплені до позаклітинної структури — базальної мембрани (епітеліоцити), колагенових волокон (фібробласти), поверхні флакона (при культивуванні in vitro) і т. ін. Інформація про зв’язок клітини з такою структурою надходить від мембранних білків інтегринів. При зв’язуванні інтегрину з позаклітинним матриксом у клітині виникає аналогічний каскад реакцій, як від рецепторів до факторів росту.
Class="center">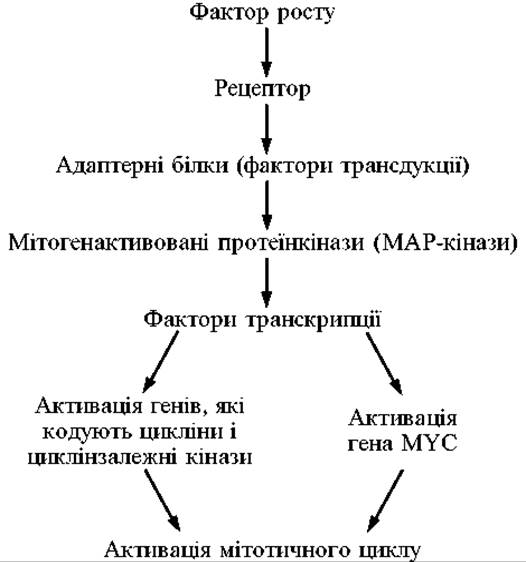
Рис. 8.2. Сигнальні шляхи від рецепторів факторів росту
Велике значення в регуляції проліферації відіграє так зване контактне гальмування. Якщо клітина встановлює контакти не з позаклітинним матриксом, а з іншими клітинами, то її поділ припиняється. Вважають, що сигнал про міжклітинні контакти йде від мембранних білків — кадгеринів.
У клітинах існують й інші сигнальні шляхи до каскаду комплексів циклін-Cdk (мотора мітотичного циклу). Тільки узгоджена дія всіх факторів дозволяє клітині обрати шлях диференціювання або поділу. Всі гени, що кодують фактори росту, адаптерні білки та інші білки сигнальних шляхів, активують мітоз клітини і називаються протоонкогенами. Мутації, що підвищують активність будь-якого фактора, можуть призвести до неконтрольованого поділу клітини. Такі мутантні алелі називають онкогенами.
Контрольно-пропускні пункти (checkpoints)
У клітинному циклі існують так звані «контрольні точки» (checkpoints), проходження яких можливе лише у випадку нормального завершення попередніх етапів і відсутності пошкоджень генетичного апарату. Під час цих зупинок активуються клітинні системи білків, здатних: 1) знайти пошкодження ДНК; 2) блокувати мітотичний цикл; 3) активувати систему репарації ДНК; 4) запустити програму апоптозу, якщо пошкодження неможливо репарувати. Дефекти білків, що забезпечують ці механізми, можуть призвести до появи дочірніх клітин з пошкодженим геномом.
Виділяють щонайменше чотири такі контрольні точки: у G1-, S-, G2-періодах і «точку перевірки збірки веретена поділу» в мітозі.
1. Контрольна точка в G1-періоді. Основна вимога до клітини, яка вступає в S-період, — нормальна будова ДНК, оскільки реплікація ушкодженої ДНК призведе до передачі генетичних аномалій потомству. Тому клітини, що зазнали мутагенного впливу, зупиняються на етапі G1і не входять в S-період.
2. Контрольна точка в S-періоді контролює правильність реплікації ДНК.
3. Контрольна точка в G1-періоді. Виявляються ушкодження ДНК, пропущені при проходженні попередніх звіряльних точок або одержані на подальших стадіях. Проводиться перевірка повноти реплікації ДНК у клітині.
4. Контрольна точка збірки веретена поділу в метафазі мітозу. Щоб уникнути неправильного розподілу хромосом, клітини затримуються в метафазі до того часу, поки всі кінетохори не буде прикріплено до мікротрубочок.
У механізмі checkpoints бере участь велика група білків — pRb, p53 та ін. Їхня сукупність утворює в клітині систему «гальм», що не дозволяють клітині ділитися у разі ушкодження генетичного матеріалу або при інших стимулах. Гени, що кодують ці білки, дістали назву генів-супресорів. Трансформація нормальної клітини в клітину злоякісної пухлини можлива тільки при порушенні активності генів-супресорів, які беруть участь у регуляції механізмів контрольних точок.
Последнее обновление: 05/02/2024
Редакционная и учебная адаптация: Данный материал сведен на основе первоисточника/оригинального текста. Команда проекта осуществила редакционную обзорную обработку, исправление технических неточностей, структурирование разделов и адаптацию содержания к учебному формату.
Что было обработано:
- устранение форматных дефектов (OCR-ошибки, разрывы структуры, дефектные символы);
- редакционное упорядочивание содержания;
- унификация терминов в соответствии с академическими источниками;
- проверка соответствия фактических утверждений текста первоисточнику.
Все упоминания об авторе, годе издания и происхождении первичного текста сохранены в соответствии с источником.